研究概述
这篇叙述性综述围绕结直肠癌(CRC)的免疫细胞、癌相关成纤维细胞(CAF)、血管与细胞外基质,组织lncRNA相关研究及代表性机制(PDF第1–2页)。
核心主线是:lncRNA的功能取决于所处细胞、亚细胞位置、结合对象和治疗情境。 同一类分子既可能促进肿瘤,也可能限制肿瘤;研究涵盖表达、结局关联和功能干预等层次。以下机制主要按综述转述,个别原始研究定点核查另行注明。
五类分子机制
| 图1分类 | 代表与作用链 | 分子作用 |
|---|---|---|
| a 引导 · Guide | RP11-417E7.1结合HMGA1,促进THBS2调控区联系,关联Wnt/β-catenin与转移 | RNA帮助把调控因子带到特定位点 |
| b 支架 · Scaffold | WEE2-AS1组装MOB1A与PJA2,促进MOB1A降解,抑制Hippo通路 | 桥接蛋白可改变蛋白稳定性 |
| c 信号 · Signal | DNA损伤/p53诱导PANDA,结合NF-YA并影响促凋亡转录 | 展示刺激响应型调控范式 |
| d 海绵 · Sponge | LINC00355结合miR-34b-5p,解除对CRKL的抑制 | 作用依赖RNA之间的竞争与可用量 |
| e 诱饵 · Decoy | HITT结合YB1,限制其参与HIF1A mRNA翻译 | RNA通过隔离调控蛋白影响血管生成 |
来源:PDF第2–4、8页,图1;均为综述归纳的已有机制。五类是作用方式,未必是互斥的分子类别。
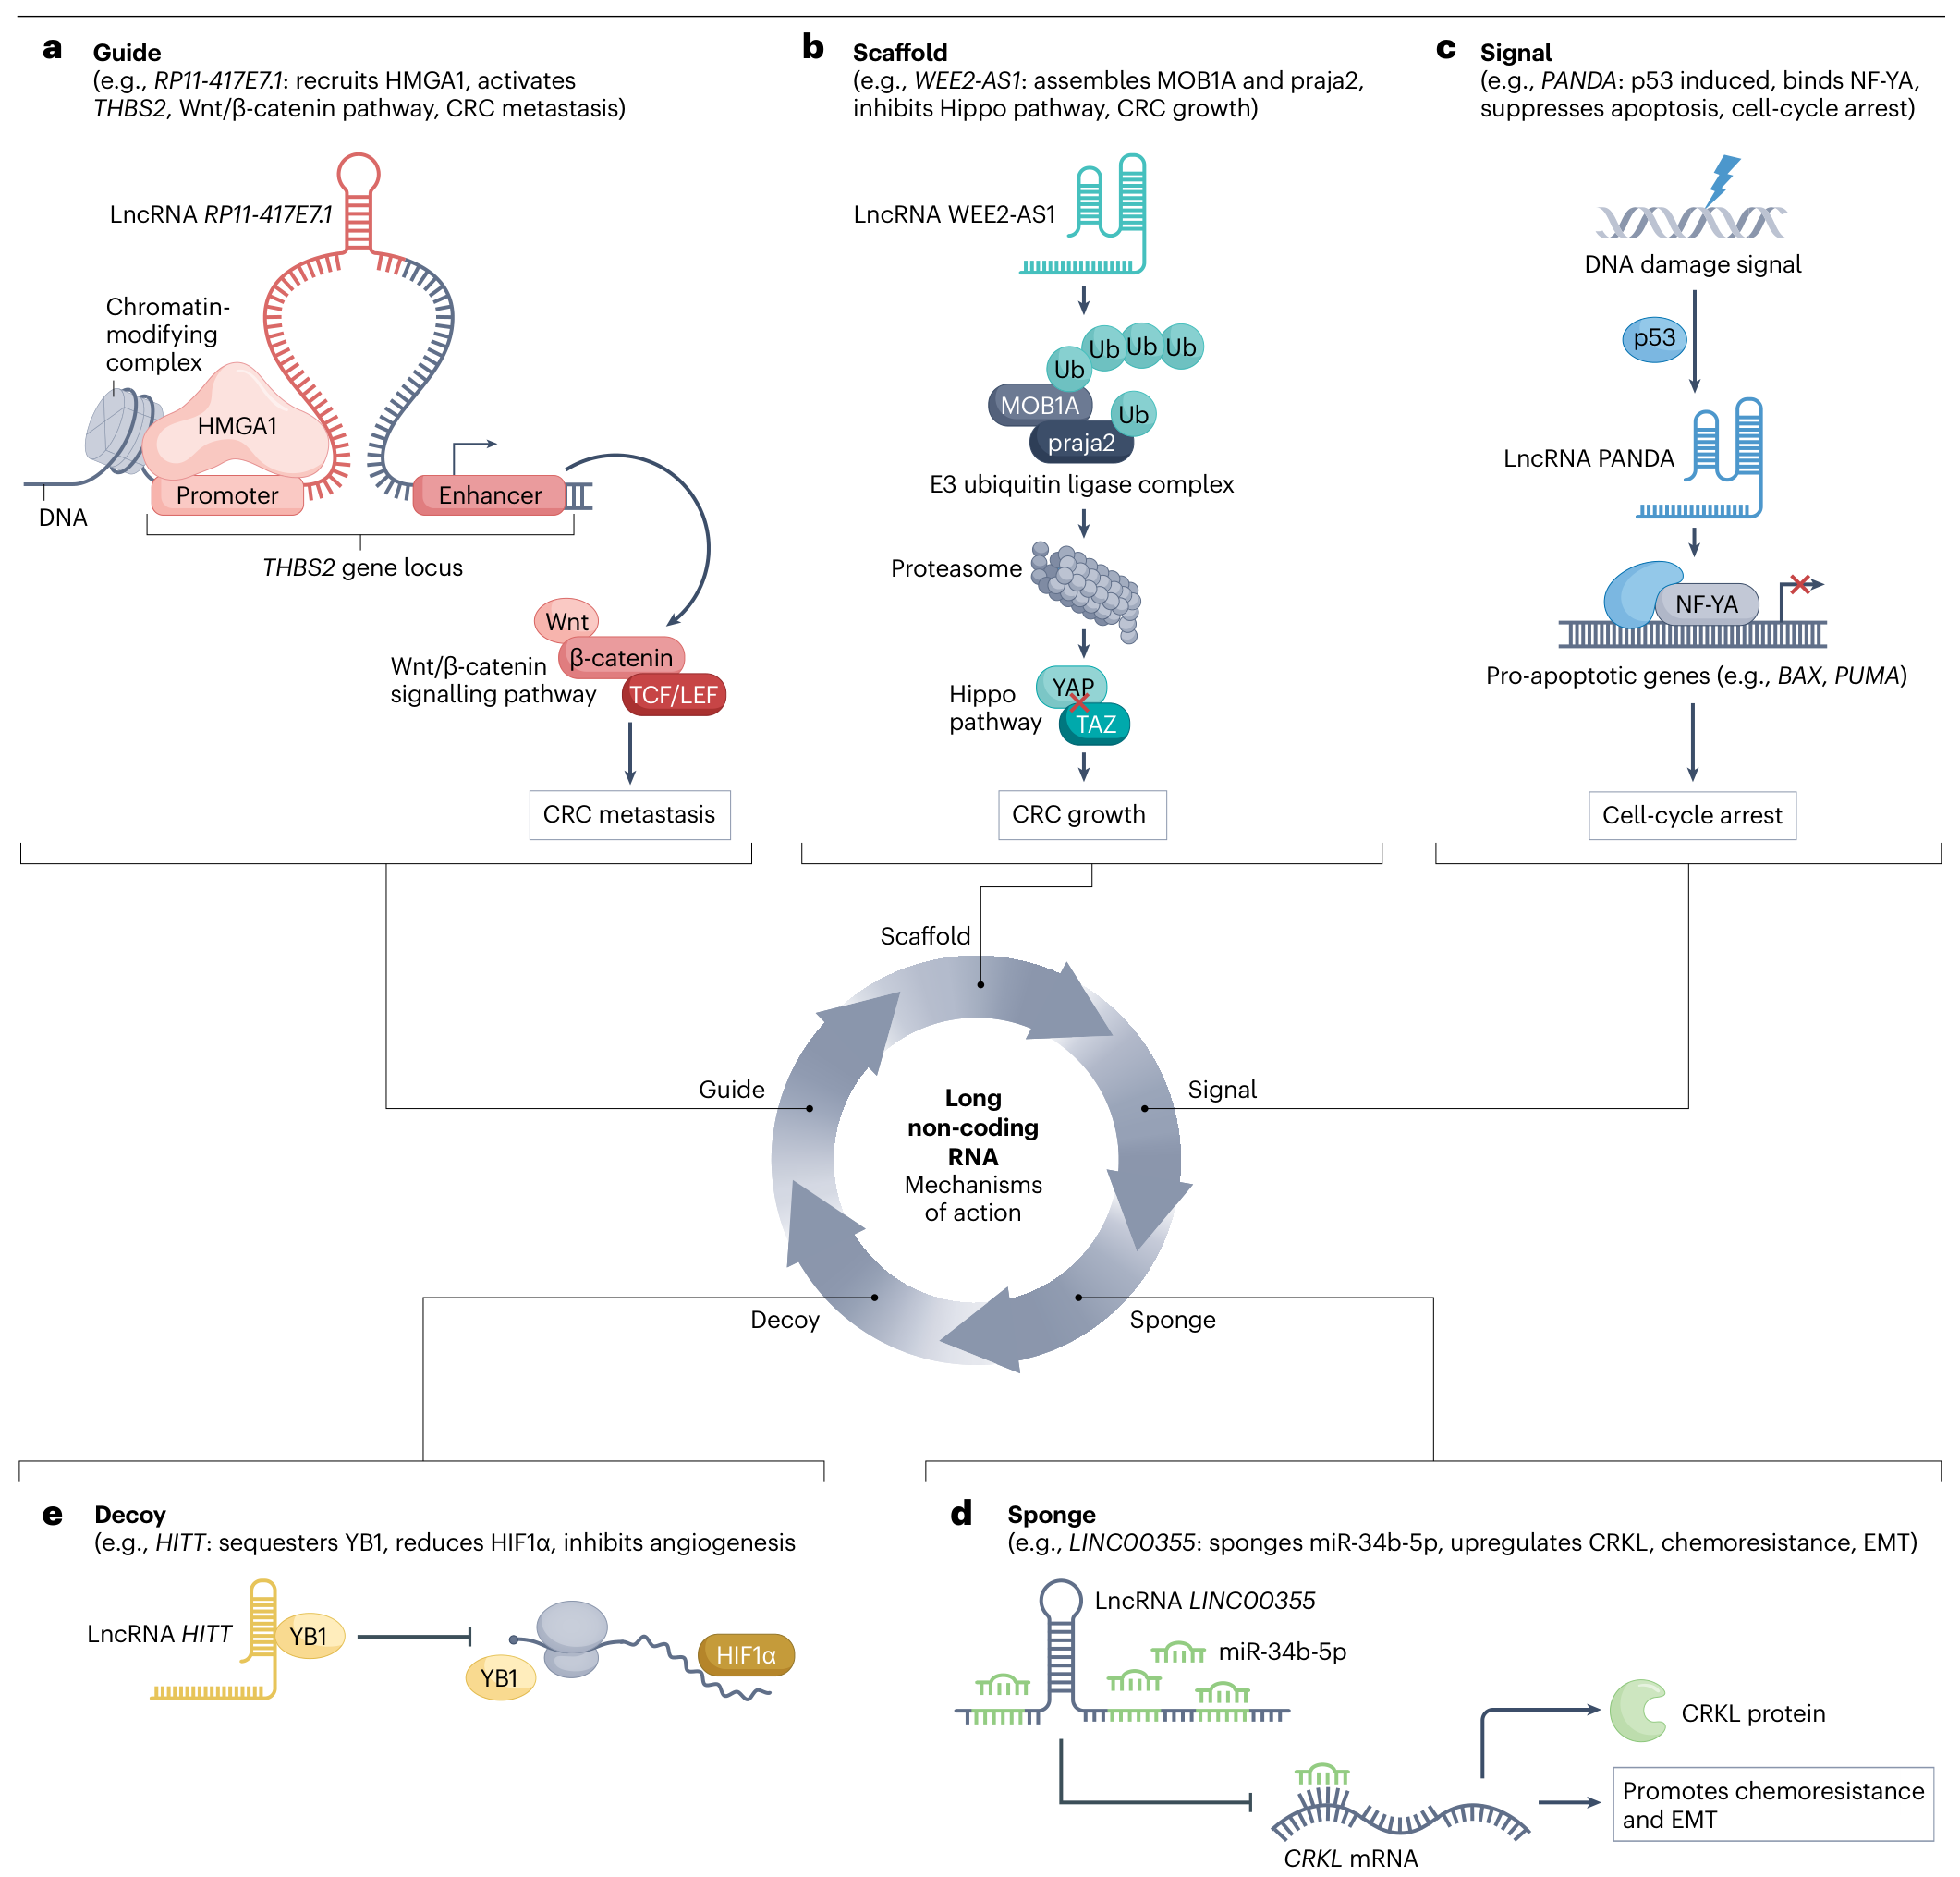
图1 · PDF第3页。图中连接RNA结合对象、分子过程与细胞表型。
囊泡介导的细胞通讯
细胞外囊泡(EV)中的RNA组成并非细胞内RNA的简单镜像:转录本丰度、RNA结合蛋白与选择性分拣都可能参与。通讯研究进一步追踪RNA转运、受体细胞摄取及功能变化;外泌体特指具有内体来源的EV(第4页)。
PWAR6给出一条跨越三类细胞的例子。 myCAF来源EV向CRC细胞传递PWAR6;它在CRC细胞内保护NRF2免于降解,提高SLC38A2及谷氨酰胺摄取,减少微环境中NK细胞可利用的谷氨酰胺,关联NK细胞凋亡和免疫逃逸。这条代谢链中,谷氨酰胺摄取增加发生在CRC细胞(第7页;原始研究结果/讨论已定点核对:Fang等,2024)。
HLA-F-AS1参与调节EV的蛋白货物。 综述描述HLA-F-AS1通过miR-375影响PFN1,EV相关PFN1进而促进巨噬细胞M2样极化(第4、7页)。
免疫、基质与血管调节
| 方向 | 代表机制 | 研究结果与体系 |
|---|---|---|
| T细胞功能 | KCNQ1OT1相关检查点调控;MIR22HG抑制TGFβ/SMAD并促进CD8+浸润 | 分子与小鼠模型中的免疫调节 |
| 转移前生态位 | CRC来源MIR181A1HG相关EV激活肝星状细胞,连接基质沉积与MDSC募集 | 细胞与小鼠研究支持CXCL12相关机制 |
| CAF与耐药 | CAF来源H19通过miR-141/β-catenin影响干性和化疗耐受 | 在CRC受体细胞中调节干性与化疗耐受 |
| 血管生成 | HITT限制HIF1α翻译;APC1促进RAB5B mRNA降解,减少EV产生 | RNA既可控制细胞内信号,也可调节向外输出的通讯量 |
来源:PDF第7–9页、表1–2,综述转述。MDSC指髓源性抑制细胞。
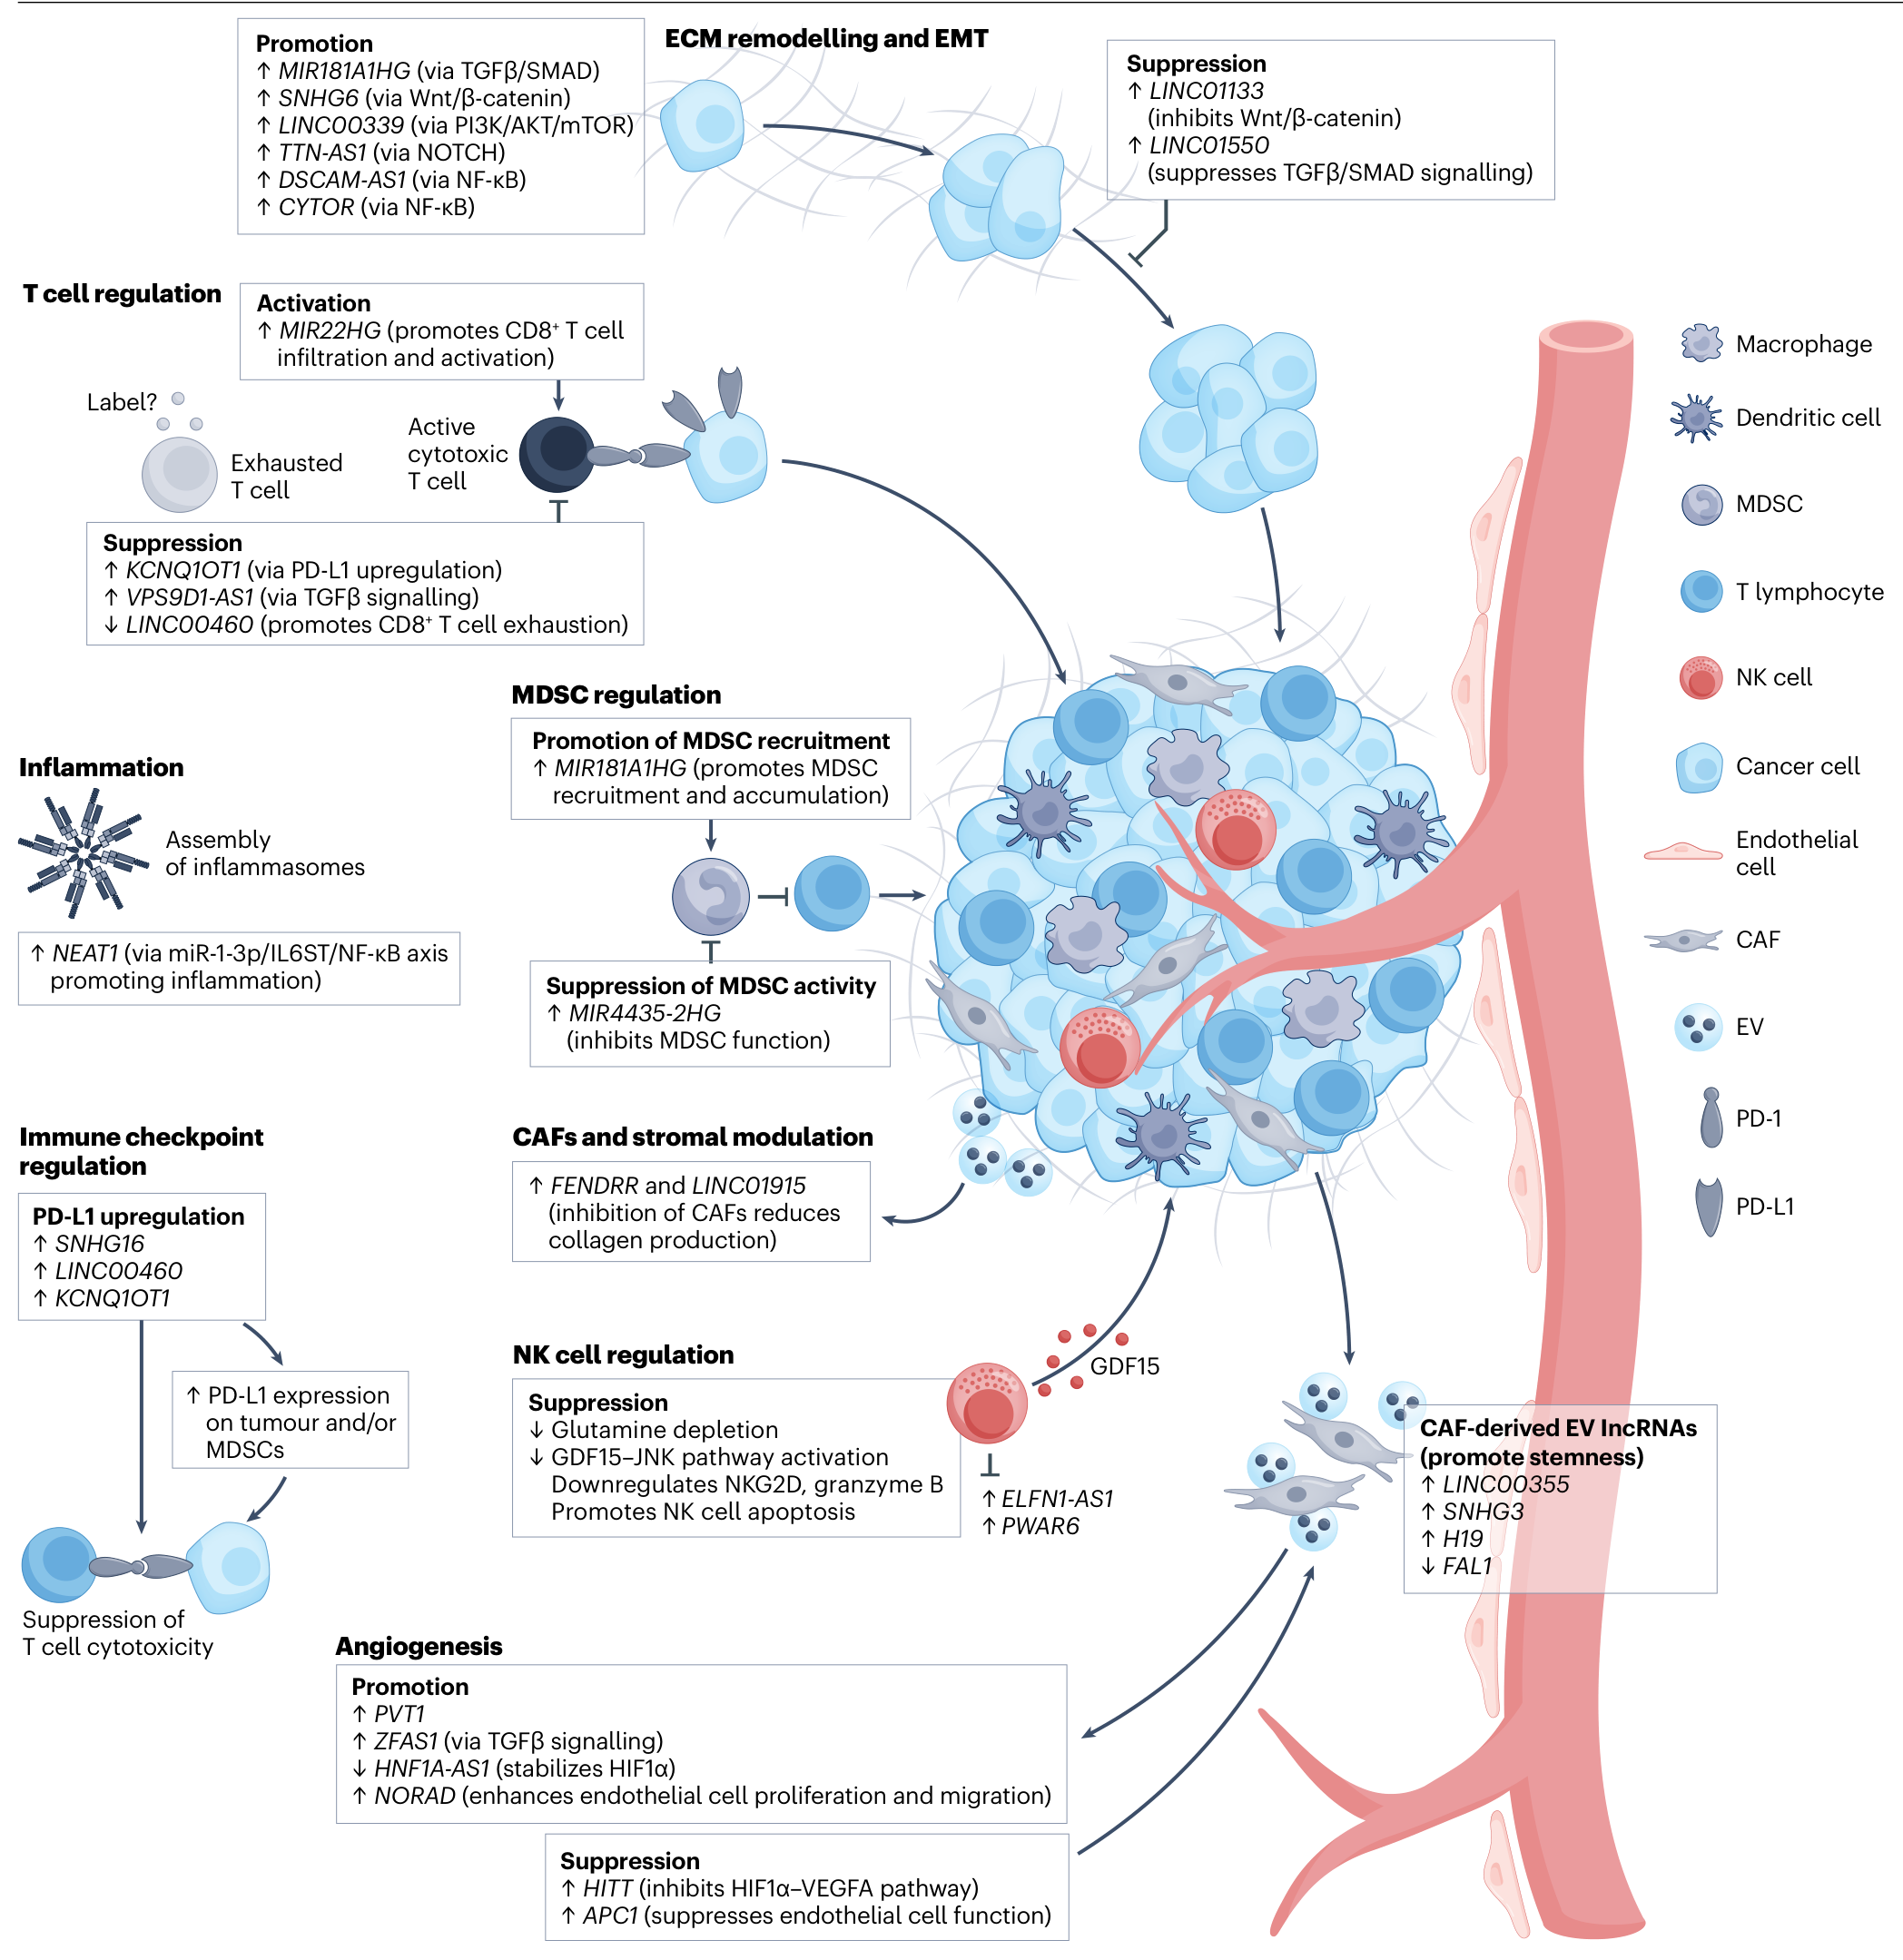
图2 · PDF第5页,lncRNA与肿瘤微环境调节。
MIR181A1HG相关机制采用CXCL12:本次已回查Gu等原始研究的相关结果及图6图注,作者检测并用抗体干预的是CXCL12。
诊断、预后与预测标志物
诊断标志物回答“能否区分患病与未患病”,预后标志物回答“结局风险如何”,预测标志物则要说明“哪类患者从某种治疗中获得不同收益”。机制性耐药研究为预测标志物提供候选线索,治疗选择价值需要治疗组间的差异获益证据(第10–11页;最后一句为本次证据评价)。
LINC02418的诊断研究分为发现和验证两个队列:综述第10页将50人初步队列与后续诊断性能混在一起。所引Zhao等原始研究实际先分析30例CRC和20名健康对照,再以独立的125例CRC及125名健康对照验证;外泌体LINC02418的AUC 0.8978、敏感度95.2%和特异度66.4%对应后者。该结果基于病例/健康对照设计及研究内选择的最佳阈值。
CRNDE-h的分母也已由原始报告核清:148例CRC与320名非CRC对照,合计468人;对照含正常结肠镜、增生性息肉、炎症性肠病和腺瘤各80人。该病例/对照研究报告AUC 0.892。
靶向干预与转化限制
MIR100HG在西妥昔单抗耐药中有两层线索:宿主转录本内的miR-100/miR-125b关联Wnt激活,lncRNA本身还可通过hnRNPA2B1稳定TCF7L2 mRNA(第10页,refs.142–143)。宿主lncRNA与其产生的miRNA分别参与上述调控。
| 转化方向 | 综述展示的阶段 | 尚需解决的问题 |
|---|---|---|
| lncRNA检测 | 小样本、回顾性研究与注册标志物研究(表3) | 前瞻性、多中心验证及相对现有工具的增量价值 |
| 抑制或补回lncRNA | ASO、siRNA或载体递送等临床前探索 | 细胞与亚细胞递送、选择性、脱靶与免疫毒性 |
| H19相关BC-819 | 表4列其他实体瘤的早期临床项目 | 利用H19启动子驱动毒素表达 |
来源:第11–12页。表4在本文收集范围内未列CRC特异干预试验。
局限与待解问题
综述未报告系统检索与证据评级方案,机制示例涵盖不同模型和研究阶段;PANDA等示例主要用于说明分子作用范式。临床转化仍需解决递送、选择性和安全性,并在前瞻性、多中心研究中验证增量价值。LINC02418和CRNDE-h的病例/对照结果还需接受预设阈值、良性疾病对照和真实筛查人群的检验(PDF第2–4、10–12页)。
原文存在图文差异:图2中LINC01133和LINC01550通路标签对调,SNHG6、LINC00339、TTN-AS1、DSCAM-AS1与第9–10页不同,LINC00460、HNF1A-AS1等方向也有出入;MIR181A1HG在第8页写CXCL12、第9页写CXCL1。本文按正文和已回查的原始研究整理,详细核对位置保留在阅读记录中。独立补充表1–3尚未取得。
相关原始研究
按机制关联度与功能证据排序,以下为原始论文线索;除另行说明的定点核对外,尚未在本次完整精读:
- PWAR6与代谢免疫,Fang等,J Hematol Oncol 2024(ref.81):已核对细胞归属与NRF2机制段,优先追查转运和救援实验。
- MIR100HG与抗EGFR耐药,Lu等,Nature Medicine 2017(ref.142):区分lncRNA宿主与miRNA作用,已核对原始论文入口。
- MIR181A1HG与肝转移前生态位,Gu等,Cell & Bioscience 2025(ref.95):已定点核对CXCL12相关结果及图6图注,未完成原始全文精读。
- APC-activated long noncoding RNA inhibits colorectal carcinoma pathogenesis through reduction of exosome production,Wang等,JCI 2019(ref.104):追查EV分泌改变与血管表型之间的因果链,尚未核查原始全文。
- MIR22HG acts as a tumor suppressor via TGFβ/SMAD signaling and facilitates immunotherapy in colorectal cancer,Xu等,Molecular Cancer 2020(ref.93):追查免疫完整模型与联合治疗对照,尚未核查原始全文。
- Carcinoma-associated fibroblasts promote the stemness and chemoresistance of colorectal cancer by transferring exosomal lncRNA H19,Ren等,Theranostics 2018(ref.111):追查来源细胞、转移货物和干性/耐药的功能检验,尚未核查原始全文。
主图与表格 · 6 张
Fig. 1 · PDF 第 3 页
Fig. 1 | LncRNA mechanisms of action. a, Guide: long non-coding RNAs (lncRNAs) mediate the interaction and recruitment of chromatin-modifying enzymes (for example, histone methylases, acetylases and deacetylases) to target gene loci. This modulation of chromatin state leads to gene activation or repression. b, Scaffold: lncRNAs interact with RNA-binding proteins to form RNA–protein complexes, which can either promote transcription by recruiting key proteins to target gene promoters or repress transcription by binding to gene repressors. c, Signal: lncRNAs function as enhancers, recruiting transcriptional machinery to adjacent target gene loci, thereby promoting transcription. d, Sponge: lncRNAs bind to miRNAs, sequestering them from their target mRNAs and preventing mRNA degradation. e, Decoy: lncRNAs contribute to gene repression by acting as decoys for transcription or translation factors. CRC, colorectal cancer; EMT, epithelial–mesenchymal transition; HIF1α, hypoxia- inducible factor 1α; HMGA1, high mobility group A1; LEF, lymphoid enhancer factor; NF-YA, nuclear transcription factor Yα; TCF, T cell factor; Ub, ubiquitin; YB1, Y-box-binding protein 1.
Fig. 2 · PDF 第 5 页
Fig. 2 | LncRNA-dependent regulation of the colorectal cancer tumour microenvironment. This schematic summarizes the major roles of long non- coding RNAs (lncRNAs) in colorectal cancer (CRC) tumour microenvironment. LncRNAs regulate immune cell activity, including T cell exhaustion, myeloid- derived suppressor cell (MDSC) recruitment, natural killer (NK) cell suppression, inflammatory signalling and immune checkpoint expression; they also shape stromal remodelling through effects on cancer-associated fibroblast (CAF) activation and extracellular vesicle (EV)-mediated CAF–tumour crosstalk. In addition, lncRNAs control angiogenesis, extracellular matrix (ECM) remodelling and epithelial–mesenchymal transition (EMT), thereby promoting invasion, metastasis, stemness and therapy resistance. Tumour-promoting and tumour- suppressive lncRNAs discussed in this Review are shown in their respective functional contexts. Arrows indicate activation or signalling interactions, whereas blunt-ended lines indicate inhibition. GDF15, growth differentiation factor 15; HIF1α, hypoxia-inducible factor 1α; IL6ST, IL-6 signal transducer; NF-κB, nuclear factor-κB; PD-1, programmed cell death 1; PD-L1, programmed cell death ligand 1; TGFβ, transforming growth factor-β; VEGFA, vascular endothelial growth factor A.
Table 1 · PDF 第 6 页
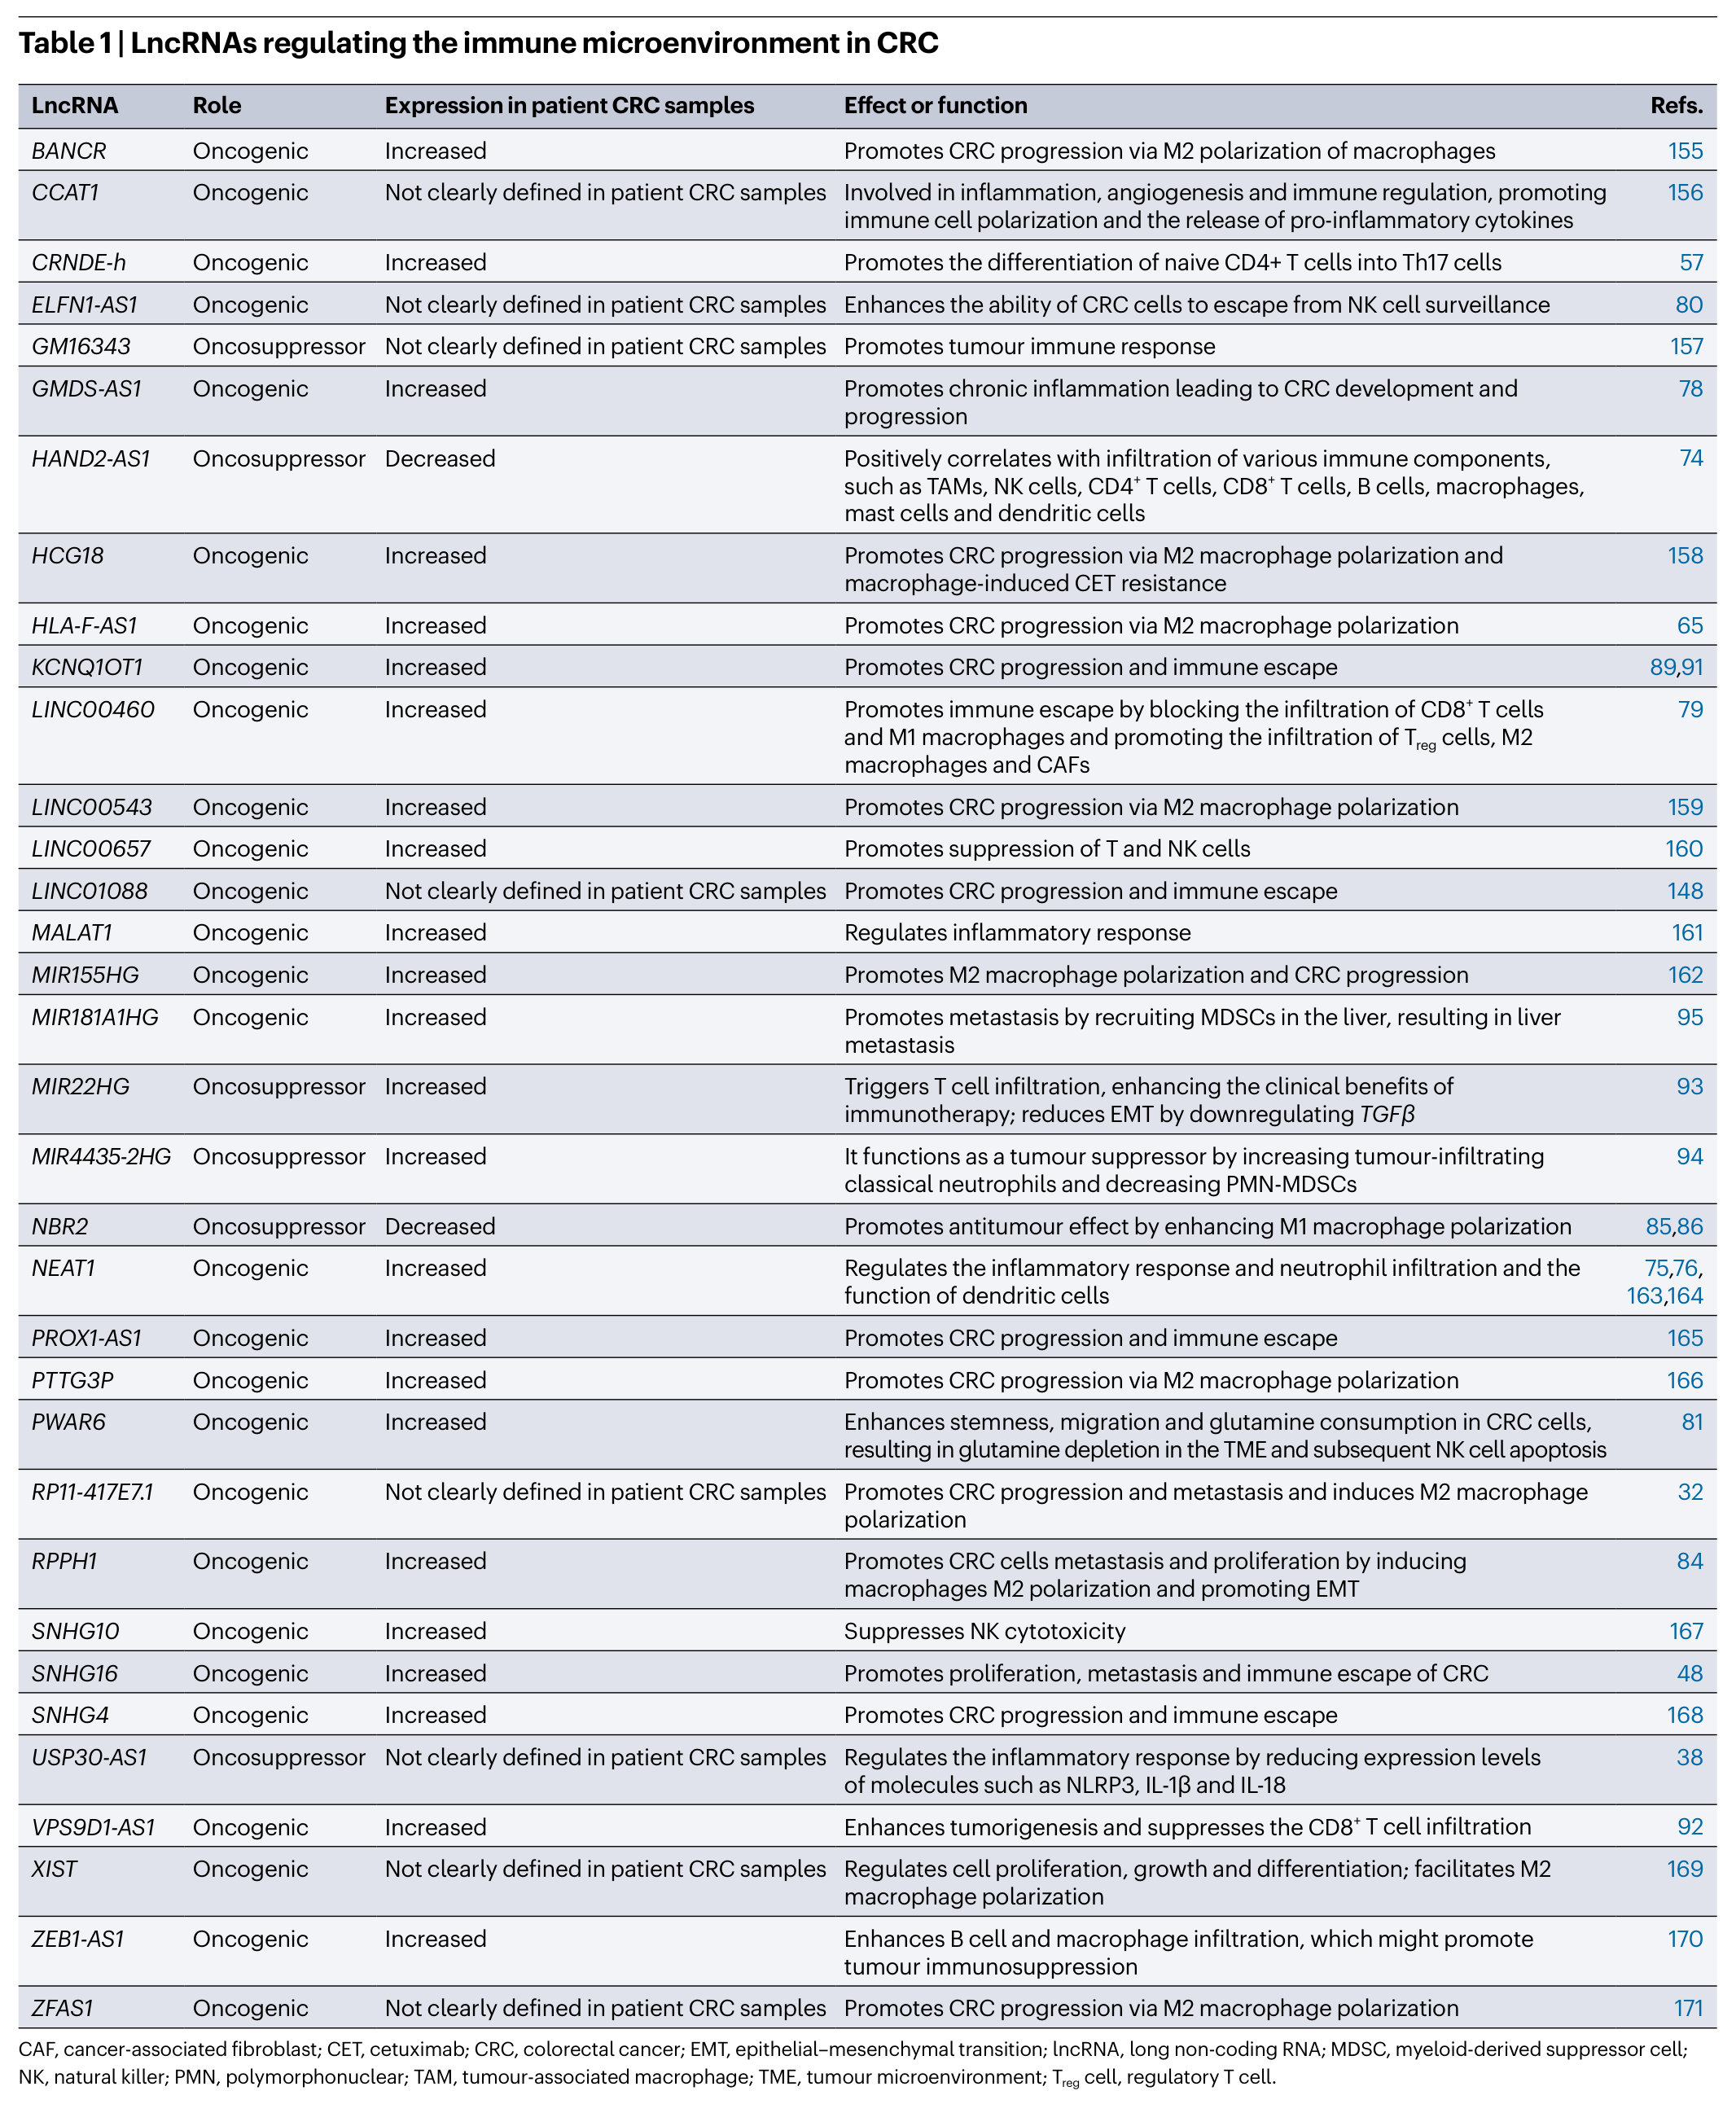
表题与脚注见截图。
Table 2 · PDF 第 8 页
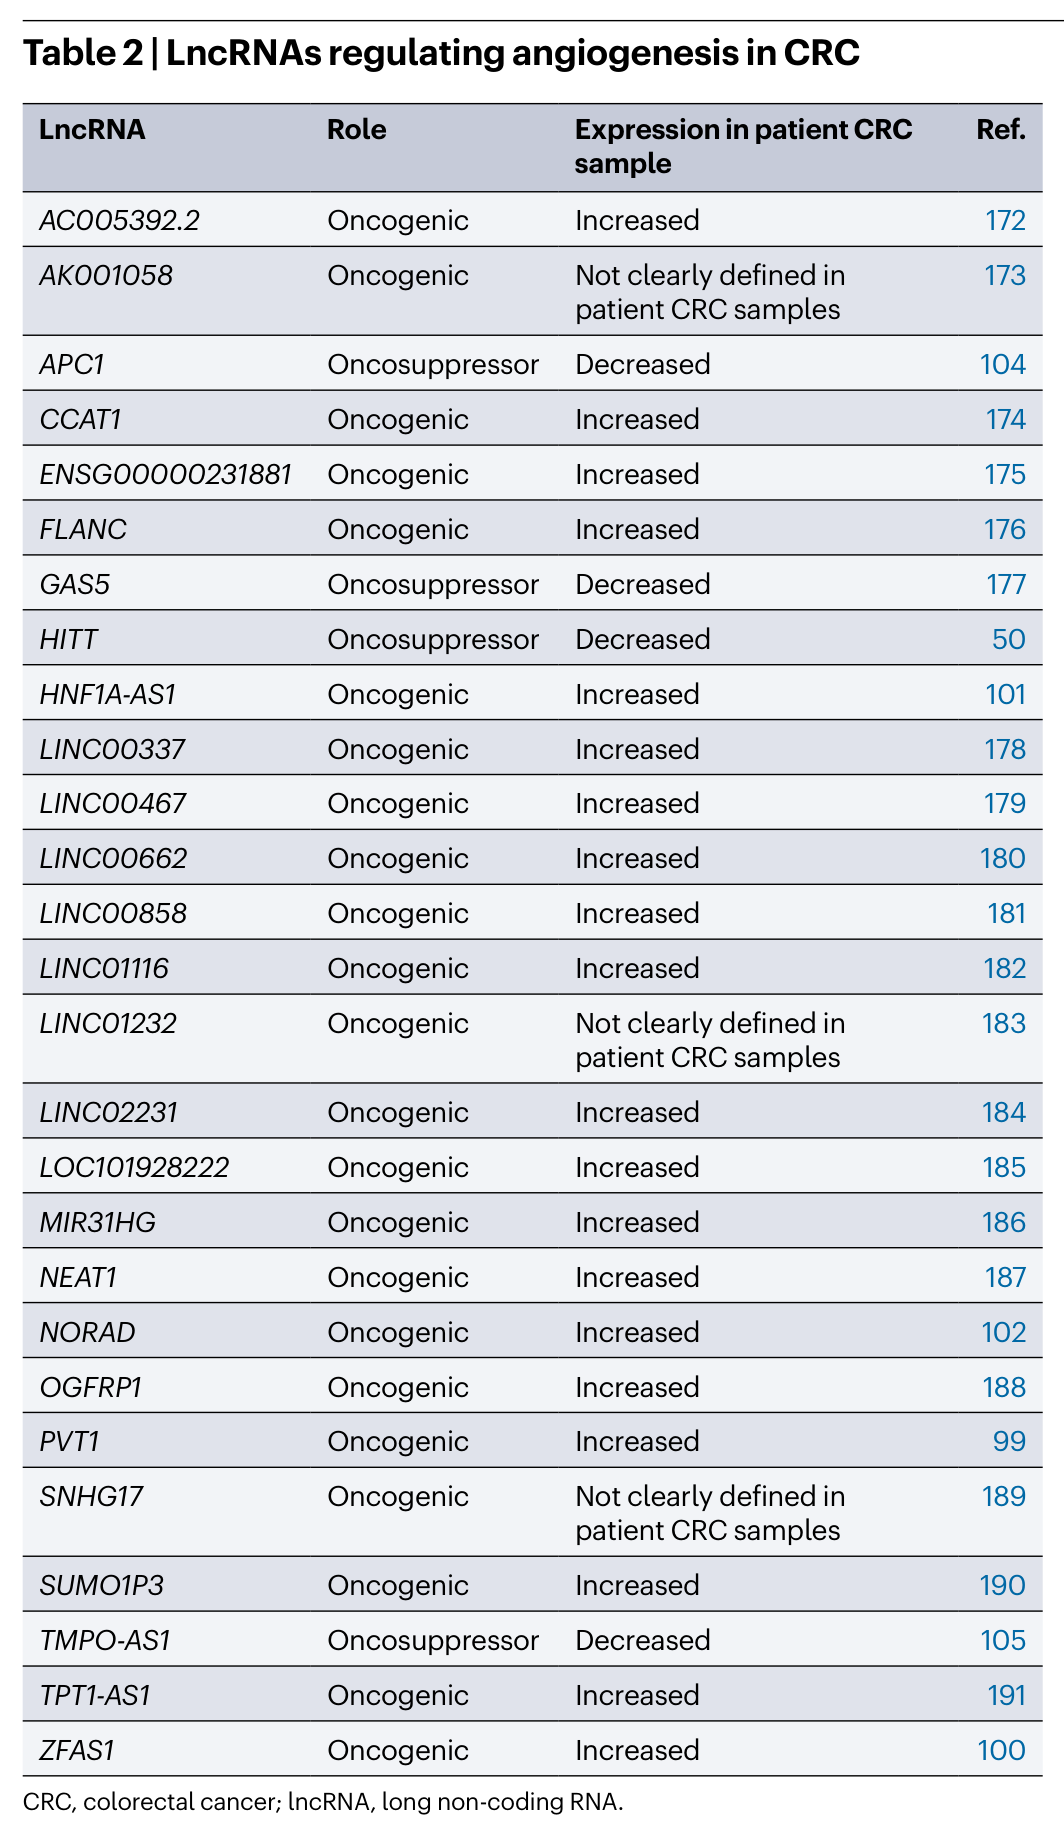
表题与脚注见截图。
Table 3 · PDF 第 11 页
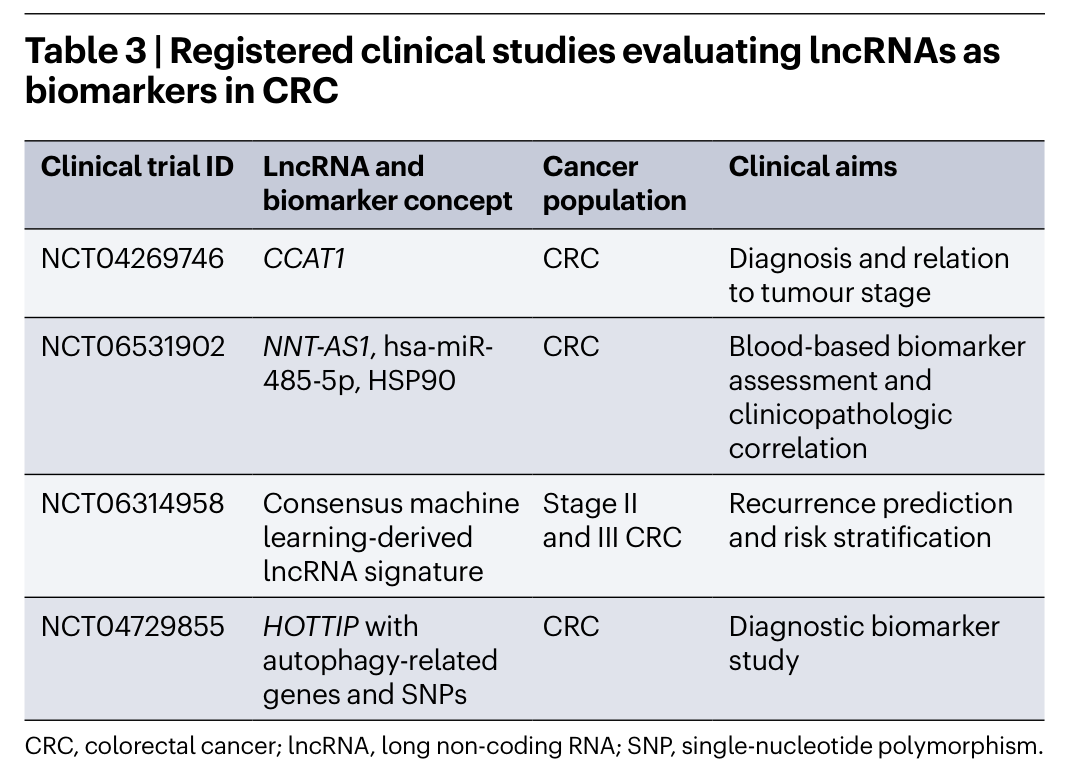
表题与脚注见截图。
Table 4 · PDF 第 12 页
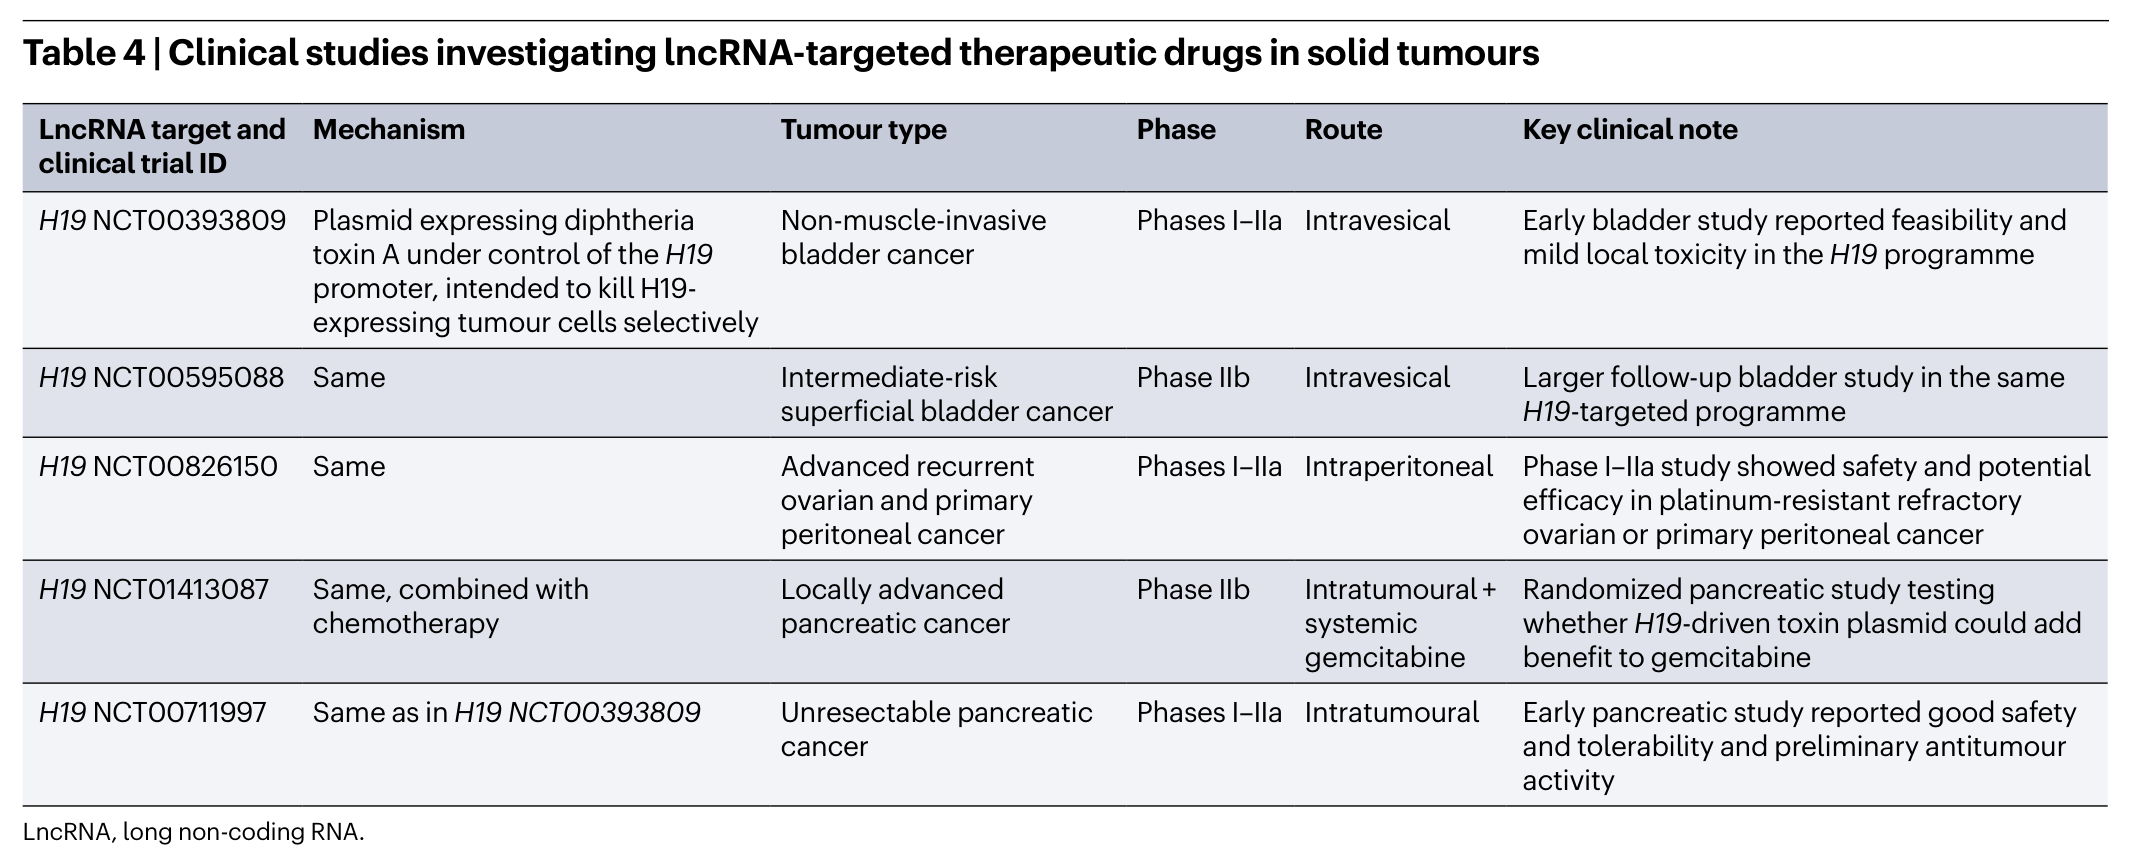
表题与脚注见截图。
完整阅读记录与证据表
文献卡:Long non-coding RNAs in colorectal cancer: shaping the tumour microenvironment and advancing precision oncology
- Paper ID:p-0001-rev-long-non-coding-rnas-colorectal-cancer
- 分析日期 / 使用的 Skill:2026-09-08 / review-read(内置流程)
- 读取范围、PDF 页数及缺失部分:主PDF共15页,正文及图表已有阅读记录;2026-09-16重核第2–4、7–12页相关段落和全部2图4表。参考文献第12–15页仅定位引用,不视为所引全文精读。独立补充表1–3未取得。
- 人工核对状态:待核对
一句话结论
这是《Nature Reviews Gastroenterology & Hepatology》的一篇叙述性综述,系统梳理了 lncRNA 通过五类分子机制(引导、支架、信号、海绵、诱饵)调控结直肠癌肿瘤微环境(免疫细胞、CAF、血管、ECM/EMT)的证据,并评估其作为诊断/预后/预测生物标志物和治疗靶点的临床转化现状——机制证据以异质性的临床前研究为主,临床效用尚待验证。
研究问题与背景
CRC 2022 年全球新发 190 万、死亡 90 万(第 2 页,引 GLOBOCAN)。文章讨论在既有治疗基础上发展的精准治疗,其分子研究多聚焦编码基因组;"dark DNA"(非编码基因组)成为新前沿。lncRNA(>200 nt、无编码能力)具有强组织特异性和情境依赖性,作者指出其失调可受拷贝数改变、点突变和表观遗传改变等驱动(第 2 页)。本文核心问题:lncRNA 如何调控 CRC 微环境,及这些机制能否转化为生物标志物和疗法。
贡献与比较对象
叙述性综述(Nature Reviews 系列),不与单篇文献比创新点,价值在于:①把散落在各原研论文中的 lncRNA–TME 证据整理为机制五分类 + 微环境四大组分框架;②给出"生物学热闹、临床冷清"的转化现状评估;③汇总注册临床试验(表 3、表 4)。
范围与选文方法(综述变体)
未报告系统检索方法(无检索式、数据库、纳入排除标准)→ 叙述性综述,选文可能偏向作者团队关注方向,按综述类型惯例不补造检索方法。未做 Meta 分析。
分类体系与代表工作(核心证据)
证据表以综述转述为主;PWAR6此前已定点核对原始结果,本轮另核MIR181A1HG、LINC02418、CRNDE-h的相关结果/方法。其他原始全文未独立精读,人工核对仍pending。
| 主张或结果 | 数字、单位、条件 | PDF 页序 | 依据类型 | 核对状态 |
|---|---|---|---|---|
| lncRNA 机制五分类:Guide/Scaffold/Signal/Sponge/Decoy | 图 1 示例:RP11-417E7.1、WEE2-AS1、PANDA、LINC00355、HITT | 第 3 页(图 1)、第 2–4 页正文 | 图+正文(转述) | 待核对 |
| EV 内 lncRNA 非细胞内容物简单镜像,存在选择性分拣 | 转录组对比(ref 64) | 第 4 页 | 正文(转述) | 待核对 |
| HLA-F-AS1 调控 CRC 来源 EV 中的 PFN1,促进巨噬细胞 M2 样极化 | 细胞系+体内验证(ref 65) | 第 4、6 页(表 1) | 正文(转述) | 待核对 |
| KCNQ1OT1–CD155 轴致 CD8+ T 细胞耗竭;另经 EV miR-30a-5p/USP22 调 PD-L1 泛素化 | CRC 细胞系(ref 89、91) | 第 7 页 | 正文(转述) | 待核对 |
| MIR22HG 下调 TGFβ 促进 CD8+ 浸润,小鼠模型增敏免疫治疗 | 小鼠模型(ref 93) | 第 7 页 | 正文(转述) | 待核对 |
| myCAF来源EV-PWAR6进入CRC细胞,稳定NRF2并上调SLC38A2/谷氨酰胺摄取,间接影响NK细胞 | 细胞模型(ref 81) | 第 7 页 | 正文(转述) | 待核对 |
| MIR181A1HG 经 EV 海绵 miR-373-3p 激活肝星状细胞 → CXCL12 募集 MDSC → 肝转移 | 体外+体内(ref 95) | 第 8 页 | 正文(转述) | 待核对 |
| CRC 细胞内的 lncRNA-APC1 结合 RAB5B mRNA 并促进其降解,减少 EV 产生及下游内皮 MAPK 信号与血管生成 | JCI 论文(ref 104) | 综述第8页;原始研究图1及相关结果 | 综述转述+原始定点核查 | 待人工核对 |
| 外泌体 LINC02418 诊断 CRC:AUC 0.8978、灵敏度 95.2%、特异度 66.4% | 原始验证队列125 CRC+125健康对照;综述误配了50人初步队列(ref 134) | 第 10 页 | 正文(转述) | 待核对 |
| 外泌体 CRNDE-h 诊断:AUC 0.892、灵敏度 70.3%、特异度 94.4%,联合 CEA 更优 | CRC148例+非CRC320例,共468人;原始图5/诊断结果已核(ref 135) | 第 10 页 | 正文(转述) | 待核对 |
| CCAT1/CCAT2 与无复发生存(RFS) P=0.049/0.022、总生存 P=0.028/0.015 | 280 例 CRC(ref 137) | 第 10 页 | 正文(转述) | 待核对 |
| MIR100HG(含 miR-100/125b)介导西妥昔单抗耐药(Wnt 激活);另经 hnRNPA2B1 稳定 TCF7L2 mRNA | 临床前(ref 142、143) | 第 10 页 | 正文(转述) | 待核对 |
| CMDLncS机器学习共识信号:作者转述II/III期复发分层及药物反应关联;治疗选择用途待验证 | 回顾性(ref 146) | 第 11 页 | 正文(转述) | 待核对 |
| 本文列出的临床干预实例为H19启动子驱动毒素质粒BC-819(膀胱/卵巢/胰腺);以H19启动子控制毒素表达;表中实例涉及上述癌种 | 表 4:5 项临床试验 NCT 编号 | 第 12 页(表 4)、第 11 页 | 表格(转述) | 待核对 |
争议与开放问题
- 同一 lncRNA 双重角色:lncRNA 既可促癌也可抑癌(如 NEAT1 促炎促瘤 vs USP30-AS1 抑炎),作者强调"不澄清机制就无法精确调免疫"(第 8 页)。
- EV lncRNA 的分拣机制与 EV 亚型归类大多不完整;细胞表面lncRNA在CRC中的功能尚待明确(第 4 页)。
- 巨噬细胞/MDSC 调控的多数证据"仍以描述性为主",在 CRC 体内哪些效应最重要不清楚(第 4、7 页)。
- 治疗转化三大障碍:递送(需 LNP/病毒载体)、特异性(基因组重叠、亚细胞定位)、毒性(核酸药物先天免疫激活)(第 11 页)。
局限
作者明确指出
- 多数生物标志物研究停留在临床前或回顾性阶段,缺乏大规模、前瞻性、多中心验证(第 11 页)。
- 机制认识不完整、临床效用研究少;检测手段(qRT-PCR、测序)成本与可及性限制临床落地(第 12 页)。
- 本文未列CRC特异的lncRNA靶向干预试验,表4为跨瘤种举例;不是当前注册库的穷尽查询(第 11 页)。
AI 推断与理由
- 原分析对LINC02418的“n=50”批评建立在综述混淆队列上,予以撤回。原始验证实际250人;病例/对照谱、最佳阈值选择及外部验证仍是效能外推的限制。
- 表 1、表 2 中多条目患者表达"未明确"(not clearly defined),临床相关性证据弱于表格行数给人的印象(依据:第 6、8 页表格)。
- 正文与表格存在少量方向性表述需复核(见下),提示表格可能经压缩改写。
优先追读清单(核查层级见各项及reading正文)
- MIR100HG 介导西妥昔单抗耐药(Nat Med 2017,ref 142)——与 CRC 精准治疗最直接相关
- APC1 抑制 EV 分泌与血管生成(J Clin Invest 2019,ref 104)——追查EV分泌与血管表型的因果链
- MIR22HG 增敏免疫治疗(Mol Cancer 2020,ref 93)——lncRNA×免疫治疗少数正面证据
- MIR181A1HG EV-肝转移前生态位(Cell Biosci 2025,ref 95)——最新 EV-转移机制
- PWAR6 谷氨酰胺-NK 轴(J Hematol Oncol 2024,ref 81)——代谢免疫交叉
- HITT–HIF1 反馈环(Cell Death Differ 2020,ref 50)——经典诱饵机制
- RP11-417E7.1/THBS2(J Exp Clin Cancer Res 2024,ref 32)——Guide 机制代表
- CMDLncS 共识信号(ref 146)——机器学习标志物,表3列注册标志物研究NCT06314958,未核其最新注册状态或结题结果
- 外泌体 CRNDE-h 诊断(Oncotarget 2016,ref 135)——病例/对照诊断验证代表,非所有液体活检研究规模之最
- CAF 来源 H19–stemness(Theranostics 2018,ref 111)——基质侧耐药代表
待核对问题与后续阅读
- CRNDE-h分母已由原始图5和诊断结果核清:148+320=468。联合CEA的AUC比较亦须分开:相对CRNDE-h单用P=0.037,相对CEA单用P<0.001,不能把两个比较都写成P<0.001。
- 旧稿将TMPO-AS1正文“抑制血管生成”与表2“抑癌/表达降低”判为矛盾,这两者方向可一致,撤回该判断;原始ref.105仍未独立核查。
- MIR4435-2HG:抑制MDSC的因子被沉默后MDSC增加,方向本身不矛盾;原始ref.94的细胞来源和干预设计尚未核查。
- CCAT1在表1为not clearly defined,在表2为Increased,需保留不同条目/引文背景;并非每张表都应覆盖全部预后研究,不能把CCAT2未列入免疫表自动判作遗漏。
2026-09-10 网页阅读质量复核
本次按review-read / web-publish完成阅读稿重写;历史全文、个人课题章节与人工区原样保留于本文件及history/20260910-165754。
| 复核点 | 证据与更正 | 来源/状态 |
|---|---|---|
| 分子分类 | 五类概括lncRNA的作用方式,类别可有重叠 | 第2–4页、图1,综述转述 |
| PWAR6细胞归属 | myCAF→EV→CRC内NRF2/SLC38A2→谷氨酰胺竞争→NK表型 | 第7页;另核原始研究PMC11657131结果/讨论,非全文精读 |
| HLA-F-AS1货物 | 调控EV相关PFN1;HLA-F-AS1自身的转运路径待验证 | 第4、7页,综述转述 |
| 图2错误/不一致 | LINC01133与LINC01550通路标签对调;部分LINC00460、HNF1A-AS1方向及通路也与正文/表不一致;保留原图,不用图中标签独立建立机制 | 第5页图与第7–10页,已视觉核对 |
| 趋化因子差异 | MIR181A1HG第8页CXCL12、第9页CXCL1;原始论文书目已定位,在线定点核查未成功,网页不认定具体名称 | ref.95 DOI10.1186/s13578-025-01365-2 |
| 临床阶段 | 表3为标志物注册项目,表4为非CRC、H19启动子驱动毒素质粒,CRC靶向RNA疗法仍处于研究阶段 | 第11–12页,两表已视觉核对 |
| 旧笔记修正 | 上方“无缺失”仅能指主PDF,实际独立Supplementary Tables1–3未取得;“唯一进入临床”过强,原文是best documented example;CCAT1表1写not clearly defined,旧待核项所写increase不准确 | 第4、6、8–9、11页 |
既往MIR4435-2HG待核项中的两句本身并不矛盾:抑制MDSC的因子被沉默后MDSC增加在方向上可一致,原始机制仍未核查。原始参考文献六篇具体题名、优先次序、链接和核查层级见更新reading.md;旧追读清单保留作历史记录,不将期刊名称当作证据强度。人工核对仍pending。
2026-09-16 全库解读复核
重读现有reading/summary/analysis,对照综述PDF2–4、7–12页及全部2图4表。新增原始证据定点核查:
- LINC02418:Zhao等原始诊断结果、图7图注及血样方法确认AUC所用验证队列为125+125;30+20是前期游离RNA队列。修正正文及分析中50人分母,撤回据此作出的规模批评。来源:原始报告。
- CRNDE-h:原始图5图注和诊断结果明确148例CRC、四类对照各80例,总数468;联合CEA相对CRNDE-h单用P=0.037,并非两个比较均P<0.001。来源:原始报告。
- MIR181A1HG:原始相关结果及图6图注明确CXCL12检测与抗体干预,解决综述CXCL12/CXCL1异名。来源:原始报告。
三项均为定点阅读,未逐图评审其整篇实验或附件。PWAR6沿用9月10日原始结果/讨论核查,其他引文未升级为独立核实。网页还补充图2的SNHG6/LINC00339/TTN-AS1/DSCAM-AS1通路错配提示。修正折叠分析中过强的“唯一临床疗法”“期刊背书”“最大样本”与机制成熟度措辞;撤回TMPO-AS1的假矛盾,统一PWAR6执行细胞。9月10日记录仅表示当时状态,其中未核清项以本轮结果为准。独立补充表1–3仍缺,人工状态pending。
2026-09-19 表述与格式复核
本轮纠正RFS译名为“无复发生存”,并明确HLA-F-AS1调控的EV相关货物是PFN1。APC1条目不再沿用综述第8页“CRC来源EV中低表达”的定位:原始JCI研究图1E/F及Results将其定位于细胞质并比较肿瘤与非肿瘤组织,机制为细胞内结合RAB5B mRNA、减少EV产生。这里只定点核查该原始研究的定位与机制,未将其记为全文精读。