包裹型与替代型肝转移
肝转移灶的差异不只在肿瘤细胞本身,还在于它如何与肝组织相接。 包裹型(encapsulated) 病灶与肝实质之间有一圈间质,将两者隔开; 替代型(replacement) 则沿既有肝结构生长,逐步取代肝细胞,并利用原有血管。既往研究将后一类模式与较差结局联系起来,但是什么让肿瘤选择这种生长方式,仍缺少机制解释。
这篇研究从肝脏的脂肪变性入手,提出一条跨越微环境、代谢和组织结构的机制链: 脂肪酸氧化增加乙酰辅酶 A,促进 MYC 乙酰化及稳定;MYC 带动脯氨酸和胶原合成,支持替代型肝转移。 这里增加的是转移灶内部胶原,与包裹型病灶的外周间质环具有不同空间位置。(PDF 第1–7页)
患者关联与小鼠实验
研究首先分析 Rotterdam 和 Göttingen 两个手术队列,分别纳入 155 和 51 名患者。这些病例只包含纯包裹型或纯替代型生长模式;方法中的“未化疗”具体要求是肝转移切除前至少六个月未接受化疗。
| 患者队列 | 无脂肪变性时的替代型比例 | 有脂肪变性时的替代型比例 |
|---|---|---|
| Rotterdam | 41%,100人 | 58%,55人 |
| Göttingen | 47%,36人 | 80%,15人 |
合并两队列并调整临床因素后,脂肪变性与替代型生长仍有关联: OR 3.57,95% CI 1.67–7.63,P=0.001。这是替代型相对于包裹型的优势比。(图1a;补充表1、3–4)
随后,作者将通常形成包裹型病灶的 CMT93 细胞用于小鼠肝转移模型。长期高脂饮食使替代型界面占比从 3.5±2.6% 增至 53.7±11.3%。这里的分母是肿瘤与肝脏接触界面的总长度。短期高脂饮食虽然提高循环脂质,却没有同样的形态变化;肝内局部增加脂肪酸供给则能推动替代型生长。这组对照支持局部肝脏环境的作用。(图1b;扩展图1;补充表2)
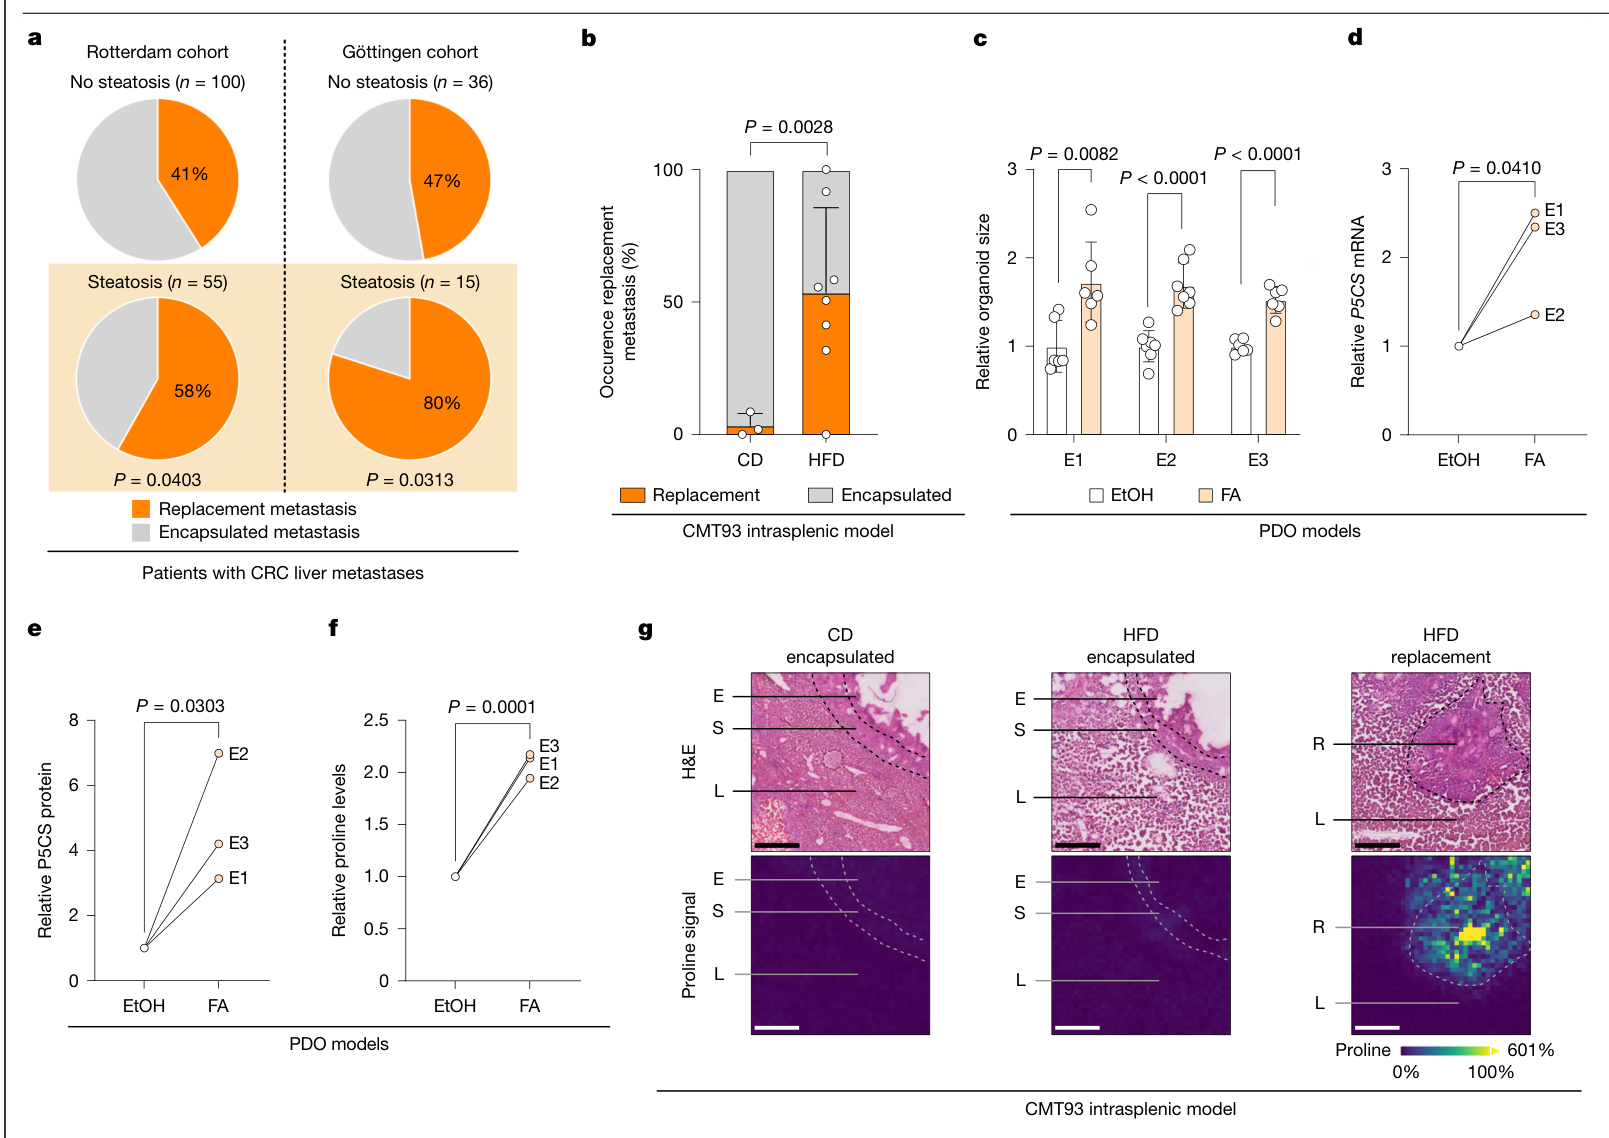
图1|患者关联、小鼠生长模式及人源类器官中的代谢变化。原文 PDF 第2页。
这些小鼠通过脾内接种建立肝转移,主要检验肿瘤细胞进入肝脏后的定植和生长。患者队列又排除了混合生长模式,因此两部分证据各自回答不同层级的问题。
脂肪酸–MYC–脯氨酸–胶原轴
在三维培养和来自三个包裹型转移灶供体的类器官中,脂肪酸处理同时提高了生长、P5CS 表达和脯氨酸水平。P5CS 由 ALDH18A1 编码,是脯氨酸合成通路的关键酶。CMT93 球体中的谷氨酰胺同位素示踪显示,新合成脯氨酸的标记比例也增加。作者将蛋白水解后的标记脯氨酸、经总体蛋白合成校正后,作为胶原合成的读出,并结合 COL1A1 干预及组织染色检验通路功能。(图1c–f;扩展图2)
作者通过几组互补实验确定了通路的功能顺序:
- 降低 P5CS:削弱脂肪酸促进的球体生长及小鼠替代型界面;补充脯氨酸或胶原能在体外挽救部分表型。
- 增加 P5CS:在普通饮食下也能提高替代型生长,但同时降低 COL1A1 后,这一效果明显减弱。
- 单独增加 COL1A1:不足以复制完整表型;与脯氨酸供给能力共同增强时效果更明显。
这说明胶原的积累需要合成原料和表达程序配合。补充图1以另一种示踪方式支持胶原合成的变化;扩展图10核查了相关基因干预的效率。(图2a–f;扩展图2–3、10;补充图1)
进一步追到上游,脂肪酸提高乙酰辅酶 A,并增加 MYC K323 位点乙酰化及蛋白稳定性。降低 MYC 会削弱下游代谢变化;恢复野生型 MYC 与恢复 K323R 突变体的效果不同,支持这个位点参与脂肪酸应答。降低脂肪酸氧化关键因子 CPT1A,也会削弱乙酰化、脯氨酸与胶原合成及替代型生长。(图2g–l;扩展图3–5)
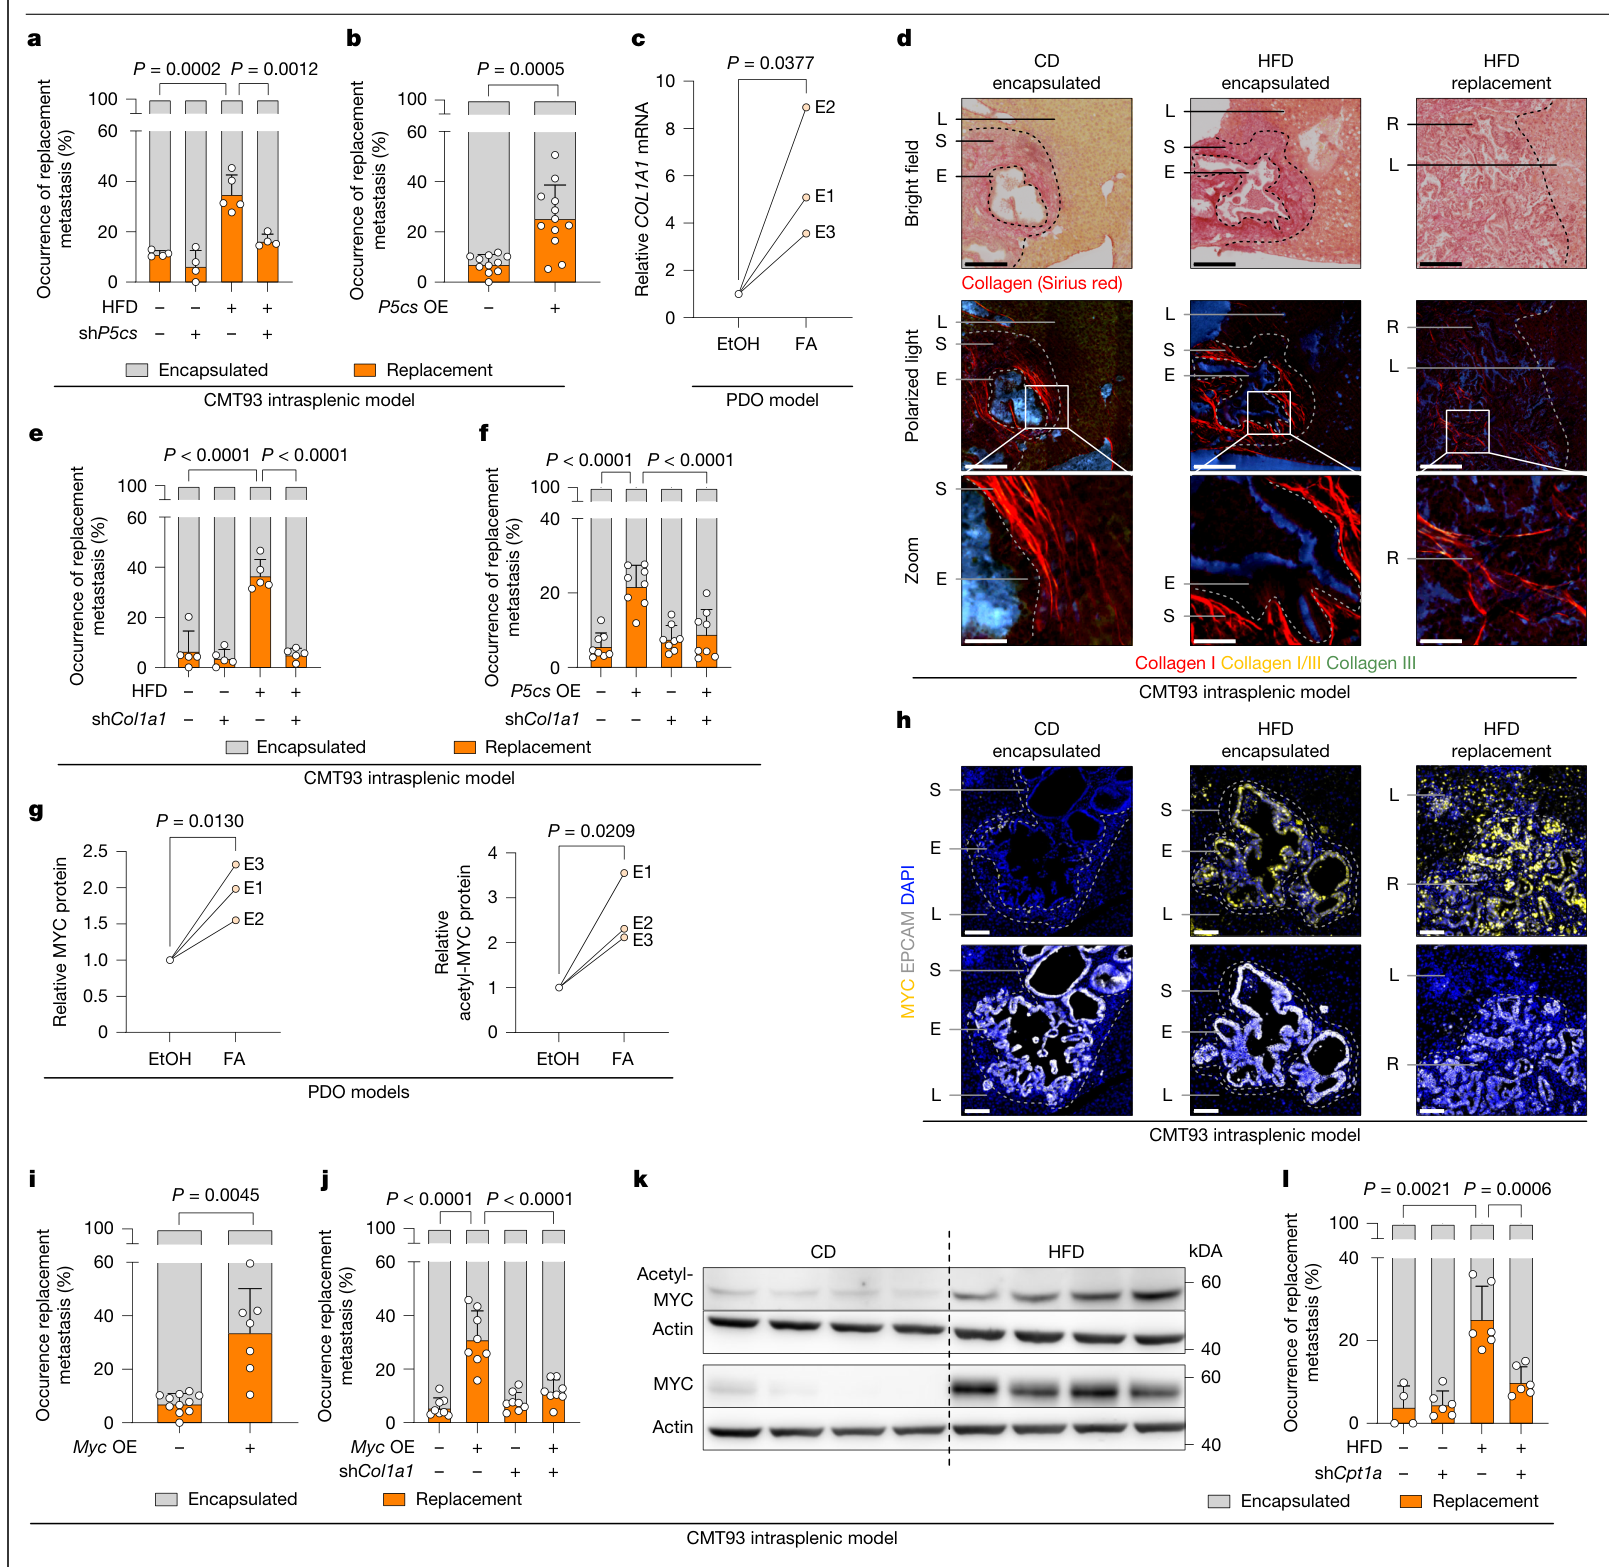
图2|通过基因干预与功能救援,连接 MYC、P5CS 和 COL1A1。原文 PDF 第4页。
这条机制由多层干预共同支持,但 K323R 的关键救援证据来自细胞实验;患者组织中的共同升高仍属关联。
替代型模型的通路依赖
如果这条通路只解释高脂饮食下的形态转换,其意义仍有限。作者因此转向本来就倾向形成替代型病灶的 MC38 和 CT26 模型。两者具有较高的脯氨酸水平、P5CS 表达和瘤内线性胶原;降低 P5CS 或 COL1A1 后,肝转移总面积显著减少。(图3;扩展图6)
MC38 的对照、P5CS 降低和 COL1A1 降低组分别为25、12、13只小鼠;CT26 则为5、6、6只。基因操作发生在接种之前,以肝转移面积为读出,显示病灶建立与生长对该通路的依赖。
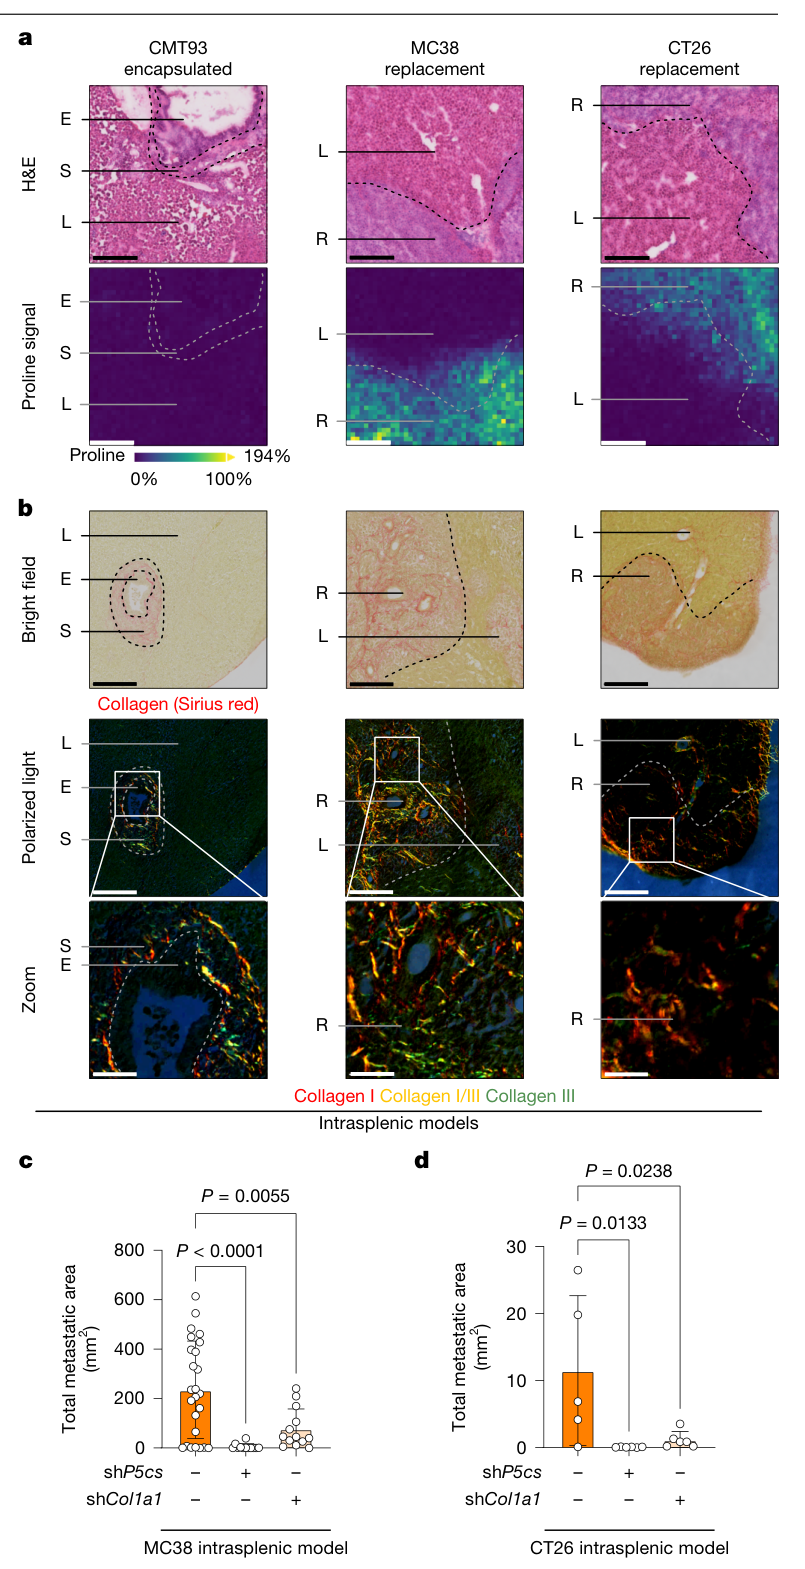
图3|两种替代型模型中的空间代谢、胶原分布和转移面积。原文 PDF 第5页。
患者组织的空间分析
作者随后回到人源材料,从空间代谢成像、转录组和组织染色三方面寻找一致性。
| 证据来源 | 样本层级 | 支持的观察 |
|---|---|---|
| 患者来源异种移植模型 | 4个模型 | 替代型病灶脯氨酸信号较高 |
| 已发表的肿瘤与邻近肝组织转录组 | 15名患者的配对样本 | 替代型富集脯氨酸及胶原相关表达程序 |
| 冰冻组织 | 19名患者 | 脯氨酸空间信号及线性胶原增加 |
| Masson 染色 | 51名患者 | 替代型瘤内胶原沉积较多 |
| 多标记免疫组化 | 14名患者 | 肿瘤细胞 MYC、P5CS 及瘤内 COL1A1 信号增加 |
上述检测分别使用对应的样本子集。代谢成像采用 50 μm 像素;患者样本主要按邻近肝组织归一化,不同图像色标也不完全相同。(图4;扩展图7–8;补充表5–7)
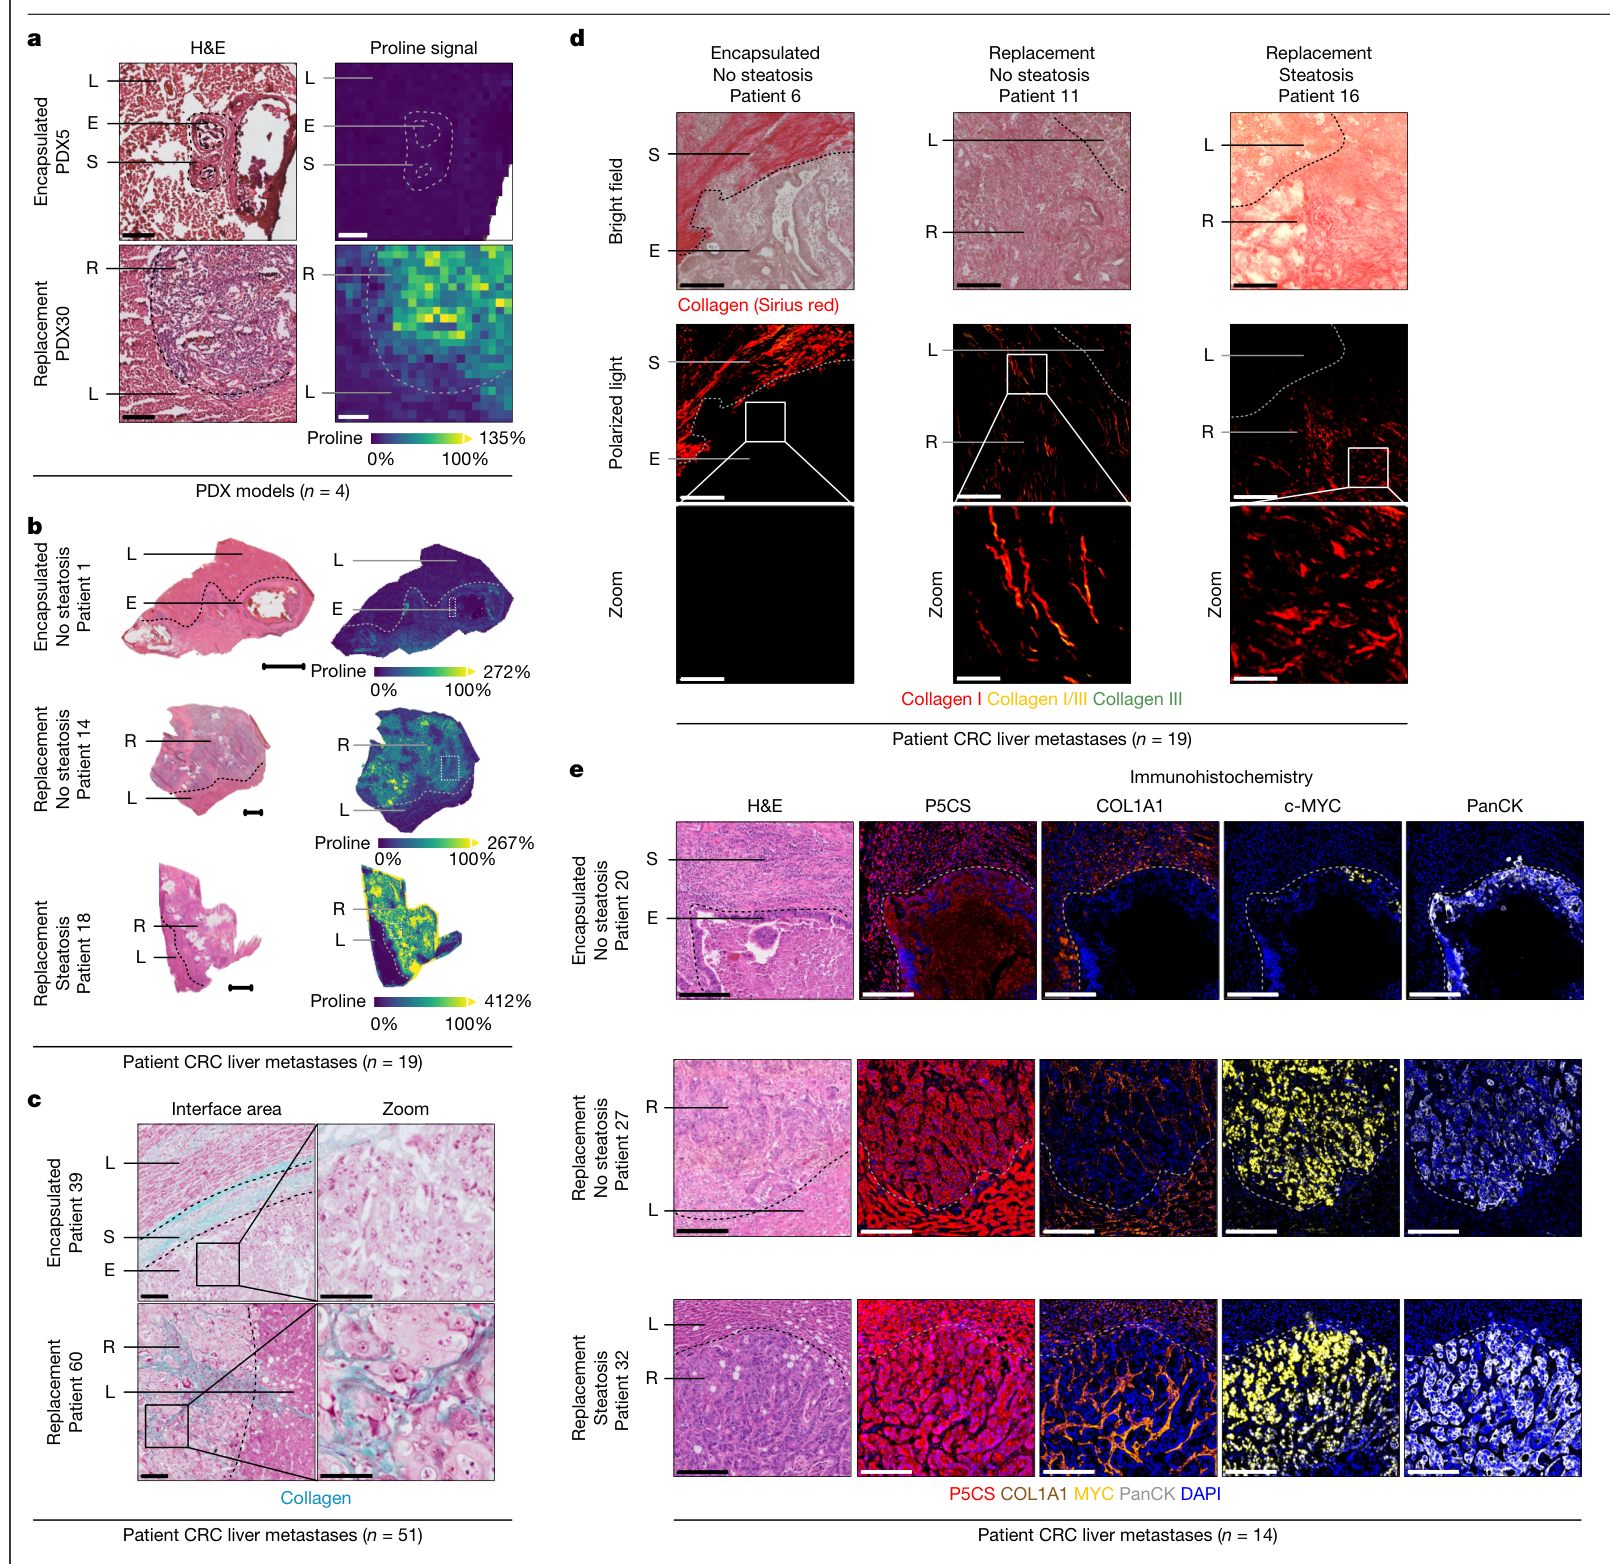
图4|人源模型与患者组织的代谢成像及病理验证。原文 PDF 第6页。
**没有脂肪变性的肝脏中,替代型病灶也可显示这条轴的增强。**这提示脂肪肝可推动通路增强,替代型转移中也存在其他激活背景。包裹型的外周间质环与替代型的瘤内胶原又呈现不同空间组织;肿瘤细胞干预进一步支持其自身胶原合成的作用。
MYC抑制的模型与临床证据
药物部分首先使用 MYCi975。它降低 MC38、CT26 的肝转移面积,在替代型人源类器官及一个替代型异种移植模型中也显示生长抑制。包裹型 CMT93 模型没有检出同样的面积下降。(图5a–c;扩展图9)
体内同系模型在接种后第2天即开始给药,属于较早阶段干预。主图类器官中部分供体所用浓度不同,而扩展图9c在统一浓度下增加了7个替代型、3个包裹型供体;这些结果增强了选择性依赖的线索。
临床部分使用的是另一种 MYC 抑制剂 OMO-103。作者从既往Ⅰ期实体瘤试验中选出9名具有基线及9周影像的患者,包括5名 CRC 患者,回顾性分析肝脏脂肪程度与治疗期间肿瘤变化的关系。 肝/脾 CT 衰减比越低,通常表示肝脂肪越多;该比值与靶病灶直径总和变化呈正相关,r=0.6929,P=0.0385。 换言之,脂肪更多与较低的增长幅度相关。(图5d–e;PDF 第15–16页)
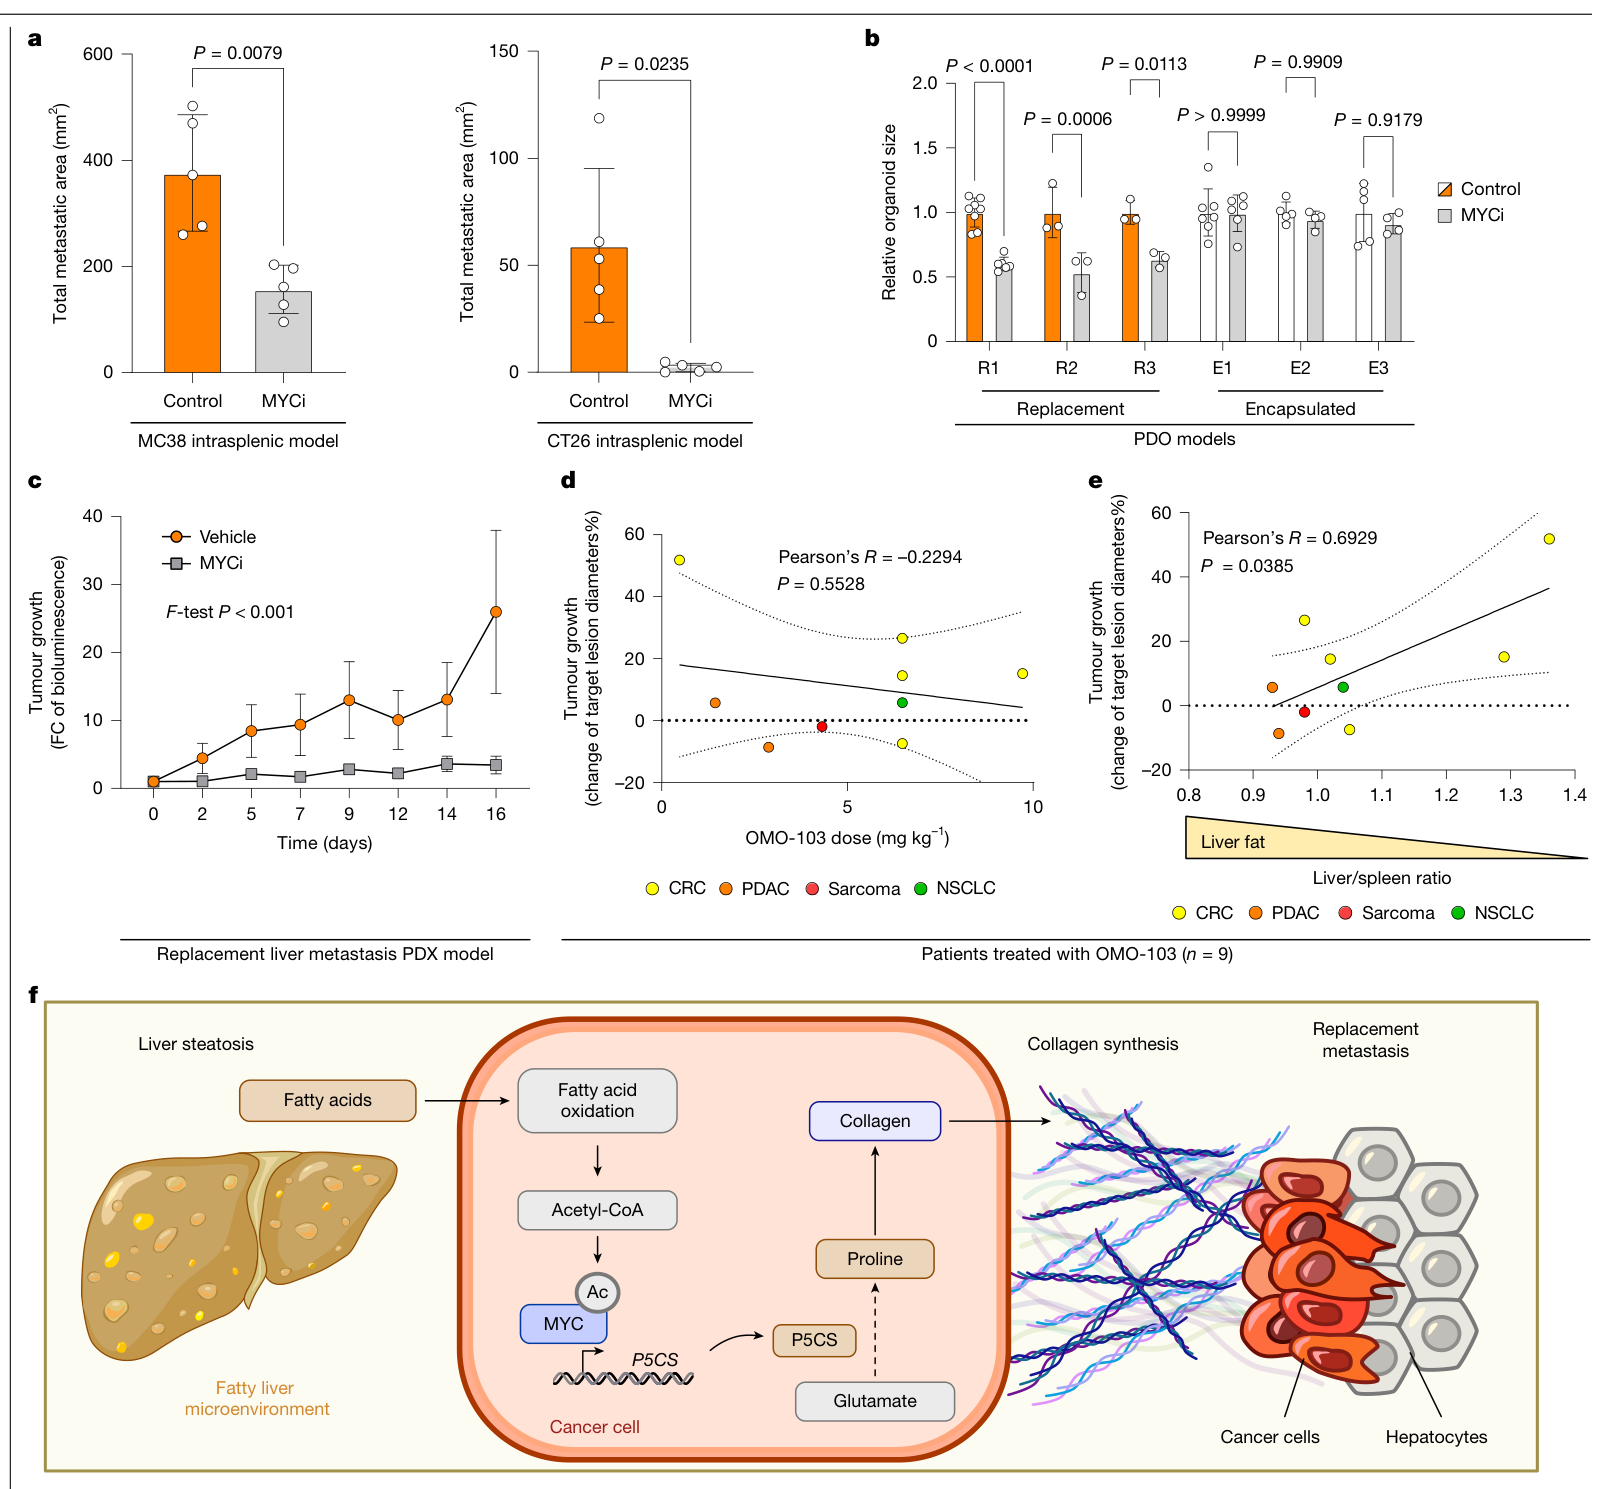
图5|MYCi975 的模型结果、OMO-103 的9例影像分析与机制总览。原文 PDF 第7页。
这9例回顾性分析提出了肝脏脂肪程度可能参与MYC抑制治疗分层的假设。
局限与未解问题
论文将器官代谢环境与肿瘤的分子依赖相联系:肝脏脂质供给通过 MYC–脯氨酸–胶原轴影响肿瘤的组织生长方式,且这一轴在不伴脂肪肝的替代型病灶中也可能活跃。下一步需要回答的是:病理生长模式能否比单独的脂肪肝指标更好地识别依赖;对已经建立的病灶是否仍有效;肿瘤细胞和宿主细胞分别贡献了多少胶原。
证据限制主要来自模型阶段和检测方式:小鼠采用脾内接种,基因操作在接种前、部分药物在第2天启动;患者手术队列排除混合生长模式。蛋白水解示踪未说明单独分离胶原,其特异性仍待核实;K323R救援主要来自细胞实验,直接启动子结合及宿主间质胶原贡献也需进一步验证(图1–3;扩展图2–5)。
临床线索来自9例混合癌种的无对照影像分析,缺少病理生长模式确认,终点为靶病灶直径总和变化。MYCi975与OMO-103属于不同药物,脂肪肝或生长模式的预测价值尚需前瞻性临床研究(图5;PDF第15–16页)。
两条承接这篇研究的原始文献线索:
- Höppener 等,2021, Histopathological Growth Patterns and Survival After Resection of Colorectal Liver Metastasis: An External Validation Study:提供生长模式与术后结局的背景。此次核实书目信息,未完成全文复核。期刊原文
- Garralda 等,2024, MYC targeting by OMO-103 in solid tumors: a phase 1 trial:原试验纳入22人,以安全性和耐受性为主要目的;本篇9例影像分析来自这一早期试验。此次核读原始摘要。原始研究摘要
主图与表格 · 5 张
fig-1.png · PDF 第 2 页
Fig. 1 | Liver steatosis increases the frequency of replacement metastases and proline levels within these lesions. a, Fraction of patients with CRC with pure replacement and encapsulated metastases, with or without liver steatosis (Rotterdam cohort, n = 155 patients; Göttingen cohort, n = 51 patients). Chi-square test. b, Percentage of CMT93 replacement metastases in mice fed with control diet (CD; n = 3 mice) or HFD (n = 8 mice). Unpaired two-tailed t-test with Welch correction. c–f, Size (c), P5CS mRNA (d), P5CS protein (e) and intracellular proline levels (f) of PDOs treated with ethanol (EtOH) control or a combination of fatty acids (FA; 66 µM palmitate and 50 µM oleate). E1, E2 and E3 indicate three individual PDO lines established from three patients with encapsulated metastases. In c, each treatment condition in each PDO line is repeated independently 6 (E1, E3) or 7 times (E2). In d–f, each PDO line is treated as a biological replicate (n = 3 PDO lines). Two-way analysis of variance (ANOVA) with Šídák’s multiple comparisons test (c); unpaired two-tailed t-test (d–f). g, Proline levels of CMT93 metastases in mice fed with control diet or HFD determined with matrix-assisted laser desorption ionization mass spectrometry imaging (MALDI–MSI) (50-μm pixel size) with corresponding H&E staining. Metabolite signals are shown after root-mean-square normalization. Scale bars, 500 µm. E, encapsulated metastasis; L, liver; R, replacement metastasis; S, stromal rim. All data are shown as mean ± s.d.
fig-2.png · PDF 第 4 页
Fig. 2 | Formation of replacement metastases depends on proline-fuelled collagen synthesis regulated by MYC. a,b, Percentage of CMT93 replacement metastases in control diet or HFD mice injected intrasplenically with cells expressing control shRNA (shControl) or shRNA targeting P5cs (shP5cs) (a; shControl in HFD, n = 5 mice; other conditions, n = 4 mice), or P5cs- overexpressing (OE) (n = 12 mice) or control cells (n = 11 mice) (b). Two-way ANOVA with Šídák’s multiple comparisons test (a); unpaired two-tailed t-test with Welch correction (b). Control overexpression cells are also shown as control in i. c, Relative COL1A1 mRNA expression in PDOs treated with EtOH or a combination of fatty acids (66 µM palmitate and 50 µM oleate). E1, E2 and E3 are PDO lines established from three patients with encapsulated metastases (n = 3 PDO lines). Unpaired two-tailed t-test. d, Linearized collagen in CMT93 liver metastases from control diet or HFD mice using Picrosirius red staining. Collagen I fibres appear red and collagen III fibres appear green in polarized light. Collagen fibres appear red under bright-field illumination. Scale bars, 200 µm (overview) and 50 µm (zoom). E, encapsulated metastasis; L, liver; R, replacement metastasis; S, stromal rim. e,f, Percentage of CMT93 replacement metastases in control diet or HFD mice injected intrasplenically with cells transduced with shControl or shRNA targeting Col1a1 (shCol1a1) (n = 5 mice) and control diet mice injected with P5cs-OE or control cells transduced with shCol1a1 or control shRNA (n = 8 mice). Two-way ANOVA with Šídák’s multiple comparisons test. Control overexpression cells are also shown as control in j. g, Total and acetylated MYC (K323) protein in PDOs treated with EtOH or fatty acids (n = 3). Unpaired two-tailed t-test. h, MYC staining of CMT93 liver metastases in mice on control diet or HFD. Scale bars, 100 µm. EPCAM staining is also shown in Extended Data Fig. 2d. i,j, Percentage of CMT93 replacement metastases in control diet mice injected intrasplenically with Myc-OE (n = 7 mice) or control (n = 11 mice) cells (i), or control diet mice injected with Myc-OE and/or shCol1a1 cells (j; n = 8 mice). Unpaired two-tailed t-test with Welch correction (i); two-way ANOVA with Šídák’s multiple comparisons test (j). k, Total and acetylated MYC (K323) protein from CMT93 liver metastasis of mice on control diet or HFD (n = 4 mice). l, Percentage of CMT93 replacement metastases in control diet or HFD mice injected intrasplenically with cells transduced with shControl or shRNA targeting Cpt1a (shCpt1a) (shControl plus control diet, n = 4 mice; other conditions, n = 6 mice). Two-way ANOVA with Šídák’s multiple comparisons test. All data are shown as mean ± s.d.
fig-3.png · PDF 第 5 页
Fig. 3 | Targeting P5CS and COL1A1 impairs growth of replacement metastases. a, Proline levels in CMT93, MC38 and CT26 liver metastases determined using MALDI–MSI (50-μm pixels), with corresponding H&E staining. Metabolite signals are shown after root-mean-square normalization. Scale bars, 500 µm. E, encapsulated metastasis; L, liver; R, replacement metastasis; S, stromal rim. b, Linearized collagen fibres in CMT93, MC38 and CT26 liver metastases using Picrosirius red staining. Collagen I fibres appear red and collagen III fibres appear green in polarized light. Collagen fibres appear red under bright-field illumination. Scale bars, 200 µm (overview) and 50 µm (zoom). c,d, Total metastatic area in livers of mice injected intrasplenically with shControl (n = 25 mice), shP5cs (n = 12 mice) or shCol1a1 (n = 13 mice) MC38 cells (c) or with shControl (n = 5 mice), shP5cs (n = 6 mice) or shCol1a1 (n = 6 mice) CT26 cells (d). One-way ANOVA with Dunnett’s multiple comparison test. All data are shown as mean ± s.d.
fig-4.png · PDF 第 6 页
Fig. 4 | Replacement metastases from patients with CRC exhibit increased proline and collagen synthesis. a,b, Proline levels in encapsulated or replacement metastases from PDX models (a; n = 4) and in encapsulated or replacement metastases from patients with CRC with steatotic or non- steatotic livers (b; n = 19) determined with MALDI–MSI (50-μm pixels) with corresponding H&E staining. Metabolite signals are shown after root-mean- square normalization. Scale bars, 200 µm (a) and 2 mm (b). E, encapsulated metastasis; L, liver; R, replacement metastasis; S, stromal rim. c, Collagen deposition in encapsulated or replacement patient CRC liver metastases (n = 51) visualized using Masson trichrome staining. Scale bars, 100 µm (overview) and 50 µm (zoom). d, Linearized collagen in frozen encapsulated or replacement patient CRC liver metastases in steatotic or non-steatotic livers using Picrosirius red staining (n = 19). Collagen I fibres appear red and collagen III fibres appear green in polarized light. Collagen fibres appear red under bright-field illumination. Scale bars, 200 µm (overview) and 50 µm (zoom). e, P5CS (red), COL1A1 (brown), MYC (yellow) and pan-cytokeratin (PanCK, white) staining using fluorescent immunohistochemistry and the corresponding H&E staining in encapsulated or replacement liver metastases from patients with CRC with steatotic or non-steatotic livers (n = 14). Scale bars, 100 µm.
fig-5.png · PDF 第 7 页
Fig. 5 | Pharmacological MYC inhibition shows selective efficacy against replacement metastases. a, Total liver metastatic area in mice injected intrasplenically with MC38 or CT26 cells (n = 5 mice) and treated with MYCi975 (MYCi; 100 mg kg−1 (body weight) day−1) or vehicle. Unpaired two-sided t-test with Welch correction. b, Relative size of PDO treated with DMSO (control) or MYCi975 (2 µM for R1 (control, n = 8; MYCi, n = 6 independent replicates), E1 (control, n = 7; MYCi, n = 6 independent replicates), E2 (control, n = 5; MYCi, n = 4 independent replicates) and E3 (control, n = 5; MYCi, n = 4 independent replicates) and 2.5 µM for R2 and R3 (n = 3 independent replicates)). R1, R2 and R3 are PDO lines derived from three patients with replacement metastases; E1, E2 and E3 are PDO lines derived from three patients with encapsulated metastases. Two-way ANOVA with Šídák’s multiple comparisons test. c, Bioluminescence-based tumour growth in mice with intrahepatically implanted PDX from a patient with replacement metastasis that were treated with MYCi975 (40 mg kg−1 (body weight) day−1, n = 8 mice) or vehicle (n = 10 mice). F-test comparing tumour growth. d,e, Correlation of dose of the MYC inhibitor OMO-103 (d) and liver steatosis as indicated by liver/spleen ratio, which anti-correlates with liver fat content (values lower than 1 indicate liver steatosis) (e) with therapy response, as indicated by change in target lesion diameter (positive values indicate tumour progression and negative values indicate tumour regression) in nine patients (five with CRC, two with pancreatic ductal adenocarcinoma (PDAC), one with sarcoma and one with non-small cell lung cancer (NSCLC)). Two-tailed Pearson’s correlation analysis. f, Schematics of the identified mechanism of a fatty liver microenvironment contributing to replacement metastases via MYC-mediated proline and collagen metabolism. Data are shown as mean ± s.d. (a,b) or mean ± s.e.m. (c).
完整阅读记录与证据表
文献卡:Steatosis shapes prognosis-defining liver metastasis heterogeneity in CRC
- Paper ID:p-0011-art-steatosis-shapes-prognosis-defining
- 分析日期:2026-09-15;晨会日期:2026-09-15。
- 使用技能:article-read、morning-report、web-publish;PDF读取与图表核验。
- 原始研究:Peng-Winkler Y 等,Nature 656, 207–215 (2026),DOI 10.1038/s41586-026-10686-2;在线发表2026-07-01。
- 阅读范围:主PDF第1–38页;独立补充图PDF第1–8页(含封面),补充表PDF第1–15页,reporting summary第1–5页。报告摘要与主PDF末5页渲染逐页一致。正文、方法、参考文献、主图1–5、扩展图1–10、补充图1–7及补充表1–9均已核读;逐页范围见coverage.md。
- 图表归档:figures/README.md,37个PNG(5主图、10扩展图、7补图、9表分15页);原PDF与3份补充PDF完整留在外层PAPER。网页选5张主图。
- 未做:出版社12份Source Data XLSX未下载重算;GEO原始测序数据未重分析;参考文献未逐篇全文阅读。图表阅读不是原始数据真实性审计。
- 人工核对:pending;当前材料已完成AI分析。
一句话结论
脂肪肝微环境能经脂肪酸氧化、MYC稳定性和脯氨酸支持的胶原合成推动CRC肝转移的替代型生长;多种遗传与药理模型支持该轴为代谢依赖,9例临床影像关联提供了进一步检验分层价值的线索。
研究问题与贡献
包裹型病灶由间质环与肝实质隔开,替代型病灶沿肝结构替代生长并利用既有血管。论文从宿主器官代谢状态解释这种病理异质性,以患者关联为起点,依次通过饮食及局部脂肪酸干预、代谢示踪、基因敲低/过表达和功能救援、人源材料回证及药理实验,连接微环境与可干预机制。其比较对象不仅是有无脂肪肝,还包括包裹型与替代型、脂肪酸处理与载体、基因干预与对照。
方法与验证
临床脂肪变性分析纳入Rotterdam 155人及Göttingen 51人,仅选择纯生长模式;至少切除前6个月无化疗,组织学脂肪变性阈值5%。合并队列采用多变量logistic回归,缺失值以20次多重插补处理。表1列出206人队列的变量分布与回归结果;缺失值处理依据上述方法记录。
CMT93模型用于高脂饮食诱导生长模式变化,MC38/CT26用于固有替代型依赖;脾内接种模型观察肝脏定植和生长。CMT93主要使用雄鼠,CT26使用雌性BALB/c;性别与模型条件相互关联。MYCi975从接种第2天开始的实验属于早期干预。PDX药理实验为单个替代型供体模型。
采用13C5-谷氨酰胺示踪游离及蛋白水解后的脯氨酸;作者将后一读出经总体蛋白合成校正后用于评估胶原合成,补充图1另用3H-脯氨酸示踪。PDF12–13未说明单独分离胶原或排除其他含脯氨酸蛋白的步骤,胶原特异性仍待核实。COL1A1干预、救援和组织染色构成另外的支持。MALDI-MSI分辨率50 μm;患者空间信号主要归一到邻近肝组织,像素嵌套于患者组织内。人源验证分别报告19人冰冻样本、14人FFPE免疫组化及51人Masson染色,各组按自身分母记录。
核心证据
所有PDF页序从1起;“补图/补表页”指对应独立PDF。表内核对指AI对原文及图表核对,不表示人工核对。
| 主张或结果 | 数字、单位、条件与边界 | 来源 | 依据类型 | 核对状态 |
|---|---|---|---|---|
| 两种生长模式 | 包裹型间质环;替代型沿既有结构生长 | 第1页;图1b/3a | 正文、图 | 已核 |
| 脂肪变性与替代型有关 | Rotterdam无脂肪100人41%,有脂肪55人58%,P=0.0403 | 第2页图1a | 图、图注 | 已核 |
| 独立中心同方向 | Göttingen无脂肪36人47%,有脂肪15人80%,P=0.0313 | 第2页图1a | 图、图注 | 已核 |
| 多变量关联 | 脂肪变性OR3.57,95%CI1.67–7.63,P=0.001;单变量OR2.28,1.25–4.13 | 补表1,第1页 | 表(嵌入图像已目读) | 已核 |
| 调整因素及缺失 | 中心、性别、年龄、BMI、pN、分化、原发位置、直径、数目;20次插补 | 第15–16页;补表1/3/4 | 方法、表 | 已核 |
| 高脂饮食改变界面 | CMT93 CD n=3、HFD n=8;3.5±2.6%至53.7±11.3%,P=0.0028;为界面长度占比 | 第2页图1b;第10–11页方法 | 图、正文、方法 | 已核 |
| 小鼠负荷与生存 | 转移面积n=8/9,P=0.013;生存10/组,log-rank P=0.0461 | 扩展图1d–e,第18–19页 | 图、图注 | 已核;人道终点 |
| 循环与局部环境 | 短期HFD无同样界面改变,P=0.7267;肝内ethylpalmitate n=10/组,P=0.0006 | 扩展图1h–i;补表2 | 图、表 | 已核 |
| 局部脂肪酸测量 | 长期HFD间质液棕榈酸约2.48倍;短期约1.49倍且未显著;局部处理约73.39倍;表为mean±SEM | 补表2,第2页 | 表 | 已核;非全部脂肪酸均显著 |
| 人源类器官应答 | 3个包裹型供体E1–E3;每条件独立重复6、7、6次;d–f以供体n=3 | 图1c–f,第2页 | 图注、图 | 已核;非按所有球体计患者 |
| 脯氨酸新合成 | PA增加13C5谷氨酰胺进入M+5脯氨酸;P5cs降低/救援及OE | 扩展图2a–h,第20–21页 | 图、方法 | 已核 |
| P5CS支持替代型 | 敲低削弱HFD表型;普通饮食OE提高替代型界面,对照11/OE12,P=0.0005 | 图2a–b,第4页 | 图、图注 | 已核 |
| 胶原处于功能下游 | P5cs/Myc/Cpt1a降低后胶原救援;Col1a1降低抵消P5cs/Myc OE | 图2c–f,j;扩展图2–5 | 图、图注 | 已核;体外救援含Matrigel对照 |
| COL1A1单独不充分 | COL1A1 OE单独组与对照无同样提升,联合P5cs OE更明显 | 扩展图3a,c,第22页 | 图 | 已核 |
| MYC活性与表达 | 数据库共同转录因子/MYC靶基因富集;PDO总MYC P=0.013、乙酰MYC P=0.0209 | 图2g;扩展图3d–i | 图、正文 | 已核;未视为本研究ChIP证明 |
| MYC提高替代型 | 普通饮食对照11/OE7,P=0.0045;Col1a1敲低削弱效果 | 图2i–j,第4页 | 图、图注 | 已核;部分对照与图2b共用 |
| MYC稳定性 | CHX追踪0–8h;脂肪酸提高acetyl-CoA及K323乙酰化 | 扩展图4f–j,第24–25页 | 图、方法 | 已核 |
| 位点功能救援 | shMyc后恢复WT或K323R,对PA诱导蛋白/脯氨酸/球体大小应答不同 | 扩展图4k–m;扩展图10g | 图、图注 | 已核;细胞实验 |
| CPT1A依赖 | 敲低降低acetyl-CoA、MYC稳定性、脯氨酸/胶原;削弱HFD替代型界面P=0.0006 | 图2l;扩展图5 | 图、图注 | 已核 |
| 固有替代型代谢差异 | MC38/CT26相对CMT93具有较高脯氨酸、P5CS及线性胶原 | 图3a–b;扩展图6a–l | 图、图注 | 已核 |
| P5CS/COL1A1干预降低转移面积 | MC38 n=25/12/13,P<0.0001/0.0055;CT26 n=5/6/6,P=0.0133/0.0238 | 图3c–d,第5页 | 图、图注 | 已核;接种前遗传操作 |
| PDX代谢回证 | 4个模型,2包裹/2替代;后者脯氨酸较高 | 图4a;扩展图7a | 图、正文 | 已核;箱图为像素分布 |
| 人转录组 | GSE151165,15人6替代/9包裹,30份肿瘤/邻肝配对样本 | 第5–6、15页;扩展图7b–c | 方法、图 | 已核;未重跑原数据 |
| 患者空间代谢 | 冰冻19人,E无脂肪7、R无脂肪7、R脂肪5;与E比较P=0.0298、0.0162 | 图4b;扩展图7d;补表5 | 图、表 | 已核;非单细胞 |
| 患者胶原 | Masson n=22E/29R,P<0.0001;冰冻19/FFPE14的偏振染色 | 图4c–d;扩展图7e–g;补图2–3 | 图、表 | 已核;瘤内与周边区分 |
| 患者MYC/P5CS/COL1A1 | FFPE14人,E无脂肪5、R无脂肪6、R脂肪3;PanCK识别肿瘤细胞 | 图4e;扩展图8;补表6 | 图、表 | 已核;患者关联 |
| 药理模型 | MYCi975降低MC38/CT26面积,各5/组,P=0.0079/0.0235;CMT93 P=0.1285 | 图5a;扩展图9a | 图、图注 | 已核;阴性不等效 |
| 人源类器官药理 | 图5b 6供体;扩展图9c增7R/3E供体,统一2μM,配对检验P=0.0156/0.2500;另扩展图3m为E4/E5 | 图5b;扩展图9b–c、3m | 图、图注 | 已核;总18供体分多实验 |
| PDX药理 | 单一替代型供体,vehicle10、MYCi9758只,16天生物发光,曲线检验P<0.001 | 图5c,第7页 | 图、方法 | 已核;生长抑制而非清除 |
| 临床再分析 | OMO-103 9人,5CRC/2PDAC/1肉瘤/1NSCLC;≥9周影像;与MYCi975不同药物 | 图5d–e;第15–16页 | 图、方法 | 已核;非新随机试验 |
| 脂肪指标与增长关联 | 肝/脾CT比与9周靶病灶直径总和变化r=+0.6929、P=0.0385;剂量相关r=-0.2294、P=0.5528 | 图5d–e | 图、方法 | 已核;比值低表示脂肪多 |
| 替代示踪与检测校验 | 补图1为3H示踪;补图5MS/MS;补图6线性R²0.9816/0.9650;补图7活细胞singlet门控 | 补图PDF第2、6–8页 | 图、图注 | 已核 |
| 实验记录边界 | Grubbs剔除规则事后选定;报告称随机/盲法;细胞系未额外鉴定、支原体检查阴性 | 第16、36–38页 | 方法、报告摘要 | 已核;未独立审计 |
局限
作者报告或方法直接限定
人队列回顾性、仅手术可切除且纯生长模式;临床OMO-103再分析例数小、癌种混合,需扩大验证。患者MSI受术中取样、保存、制备和衍生化等影响。部分对照数据在同一批实验相关图中复用,图注明示;相关图之间存在对照复用。主文多处实验选择特定性别与模型,性别效应尚待检验。
AI推断与理由
- OR是生长模式优势比,不能等同肝转移发生或死亡风险;本研究未以这206人证明脂肪肝改变长期OS。
- 脾内模型绕过入侵入血;接种前敲低与第2天药理处理也不是已建立晚期病灶的临床治疗。
- CPT1A–MYC–胶原的干预和救援支持路径依赖,但不排除其他MYC功能、其他脂质作用和宿主胶原来源;K323R没有在此文形成完整体内患者证据链。
- 替代型在无脂肪肝时也有代谢特征,因此脂肪肝不是该类型的必要条件。纤维间质的位置和细胞来源不能压缩成胶原总量判断。
- 9例治疗后关联缺少对照与治疗×标志物交互,不能区分预测与一般预后作用;选择具有9周影像者也有选择偏倚。肝/脾比是影像替代指标,靶病灶并非限肝脏,也未确认9人HGP。
- 人群统计、mouse n、PDO供体、独立培养重复、类器官个数、ROI与像素必须区分。MYCi975部分供体浓度不同;组内显著/不显著也不等同类型间交互成立。
- 小鼠PDX生物发光的组间多项式曲线比较不能替代患者生存;原始数值和动物内重复测量未重新建模。
原文疑点与待人工核对
- 扩展图1a各临床变量所列样本数与脂肪变性分析队列不同;补表1经插补后206人的分布不能倒推为所有原始变量完整。网页只用明确对应图1a/补表1的分母。
- 补表3原发部位“at the flexura lienalis 62,distal 3”的排列值得与原始数据库复核;补表4淋巴结阳性25写50%,与51总人数不完全一致;补表6患者33最大径0.18未静默改写。
- Reporting summary将部分补表称Extended Data Tables,并提及Fig.6,但最终主文只有5幅主图;作为版本/指代问题记录,不额外虚构图6。其Clinical data勾为n/a,与正文临床再分析内容不协调,需作者说明。
- 图4b/扩展图7d部分H&E非组织背景经作者遮罩处理,方法披露;不同连续切片区域与强度不能当作完全重合或同一标尺。
- MYC相关作者存在Peptomyc任职/创始人/股权关系,主文利益冲突已披露;不据此推断研究失实。
关联原始文献与实际核查深度
- Höppener DJ等,Histopathological Growth Patterns and Survival After Resection of Colorectal Liver Metastasis: An External Validation Study,JNCI Cancer Spectrum 2021;5:pkab026,DOI10.1093/jncics/pkab026。书目由期刊/PubMed检索核实,全文未读;主文引用其生存差异不视作本研究新队列终点。链接:https://academic.oup.com/jncics/article/5/3/pkab026/6179341 。
- Garralda E等,MYC targeting by OMO-103 in solid tumors: a phase 1 trial,Nature Medicine 2024;30:762–771,DOI10.1038/s41591-024-02805-1。PubMed原始摘要已读:22人,安全性/耐受性主要终点,19人可评价,12人达9周评估,8例稳定;其中单例体积减少不等于RECIST直径PR。未阅读全文。链接:https://pubmed.ncbi.nlm.nih.gov/38321218/ 。
2026-09-16 全库解读复核
重新核对卡片、summary、reading及本分析;5主图、10扩展图均查看,并对照正文PDF1–8、方法10–16、相关图注及补表1–7。主要数字、患者/小鼠分母、给药时序及9例OMO-103关联的限制一致。补充图1和补表1–3原图重新查看,其余补表按文本核对;此次未重新逐图查看补图2–7或逐页复核报告摘要,既有记录保留,不把上次覆盖写成本次重读。
本轮修订的是胶原合成测量的证据强度:PDF12–13的13C方法对蛋白组分水解后测M+5脯氨酸,并用HPG总体蛋白合成读出校正;3H方法描述蛋白沉淀的放射性。未交代胶原专门分离步骤,故其特异性待核,不单靠此读出断言直接追踪到胶原。COL1A1敲低、救援和染色等实验另提供独立支持。另修正两处图号定位。
未重算Source Data或原始数据,人工核对状态不变。修改前版本见history/20260916-library-review。