模型概述
免疫原性细胞死亡(ICD)能够把肿瘤细胞的抗原与危险信号交给免疫系统;三级淋巴结构(TLS)则为局部适应性免疫提供空间组织。本文关心的是两者之间的连接:死亡信号能否同时改变血管入口和基质支架,让被招来的细胞形成稳定、具功能的免疫结构?
作者提出两个相互衔接的模块:以STING为中心的先天炎症与血管募集,以及以淋巴毒素β受体(LTβR)为中心的基质组织化。 作者据既有研究提出这一观点框架(PDF第1–2、6–8页)。
本文于2026年9月16日发表于《Nature Reviews Immunology》,正式类型为Perspective;未报告系统检索、纳排标准或Meta分析。期刊原文
TLS的结构与成熟度
与胸腺、骨髓等初级淋巴器官,以及淋巴结等次级淋巴器官不同,TLS是在外周非淋巴组织中受炎症诱导形成的异位结构。其组织程度有连续变化:从松散的细胞聚集,到具有T、B细胞分区、滤泡树突细胞(FDC)网络及生发中心的成熟结构(第2–3页、表1)。
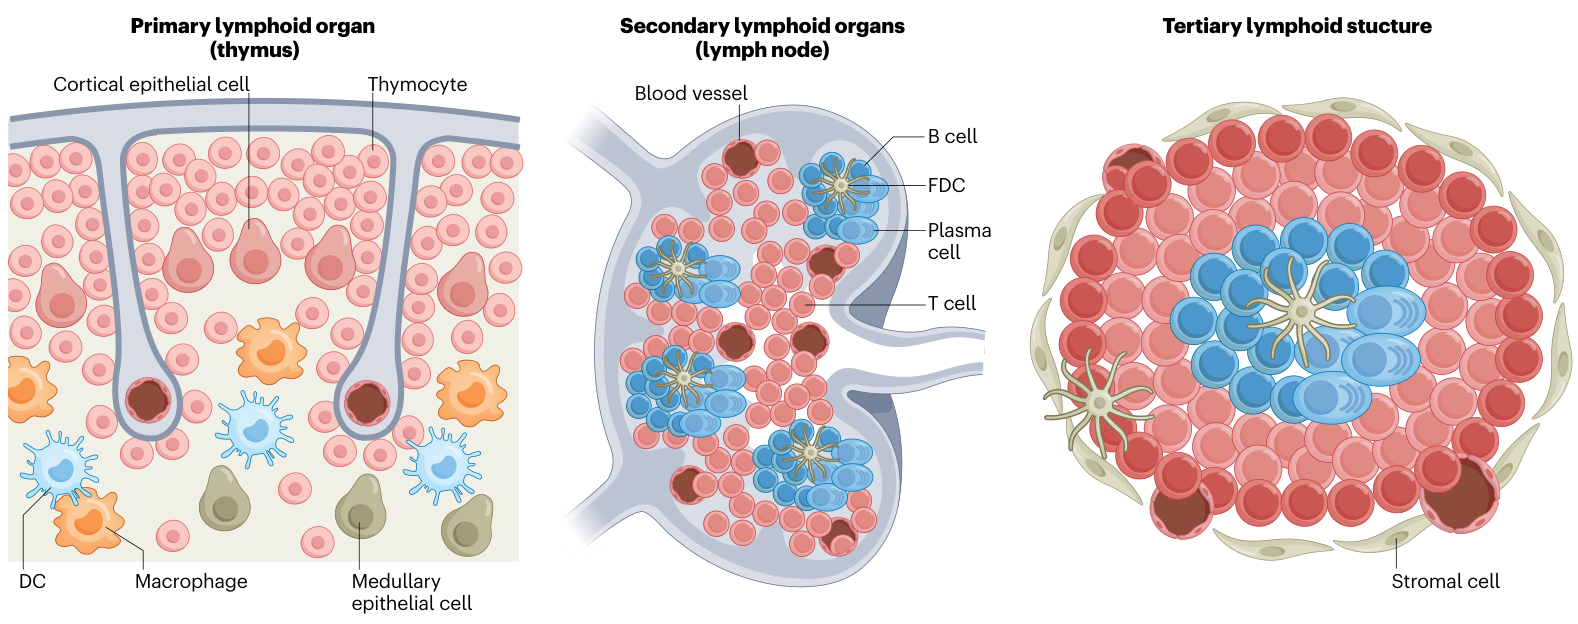
图1 · PDF第2页。TLS与淋巴结的组织结构对照。
| 观察层级 | 结构与功能特征 | 后续评价方向 |
|---|---|---|
| T细胞与树突细胞聚集 | 局部募集、抗原呈递环境可能增强 | B细胞滤泡与生发中心是否建立 |
| PNAd等标志阳性的HEV样血管 | 出现支持淋巴细胞进入的血管特征 | TLS成熟度与长期免疫保护 |
| T/B分区、FDC网络及生发中心 | 具备更完整的淋巴组织结构 | 抗体特异性及患者结局 |
| 局部抗原特异性反应与持久保护 | 进一步支持结构具有免疫功能 | 跨癌种、治疗情境的可重复性 |
依据:第2–3、6–9页的结构区分;右栏为据此作出的证据解释。FDC是基质来源细胞,与负责经典抗原呈递的造血来源树突细胞不同。
STING相关炎症与血管募集
ICD是按能否诱发针对死亡细胞抗原的适应性免疫来定义的。它依赖抗原性与佐剂性配合:抗原提供识别对象,危险信号帮助募集、激活抗原呈递细胞。常见信号包括细胞表面的钙网蛋白暴露,以及ATP和HMGB1释放。功能评价进一步检测针对死亡细胞抗原的适应性免疫反应(第3–4页、Box 2,第6页)。
作者把cGAS–STING放在早期连接位置:胞质DNA由cGAS感知并促成cGAMP生成,后者激活STING,推动Ⅰ型干扰素及炎症信号。cGAMP也可参与细胞间信号传递。其中cGAS识别胞质DNA,cGAMP作为第二信使作用于STING(第4页、图3)。
血管端的重要变化包括黏附分子和趋化因子表达、淋巴细胞募集及HEV样特征。本文转述的ADU-S100小鼠黑色素瘤研究观察到血管正常化和T细胞–DC聚集,但这些结构缺乏组织化B细胞滤泡和生发中心。该研究主要呈现早期血管募集与免疫聚集(第4、6页,ref.47)。
STING的效应还受持续时间和细胞背景影响:短时STING活动可支持交叉启动;慢性或失调的信号也可能支持促肿瘤炎症与免疫抑制。其效应随上述条件变化(第4页)。
LTβR与基质组织化
图2把一般TLS形成过程分成炎症、基质激活、T/B分区和成熟四步。这里的关键变化,是成纤维细胞等基质细胞获得组织者功能,通过趋化因子和黏附网络维持细胞定位(第3、5–7页)。
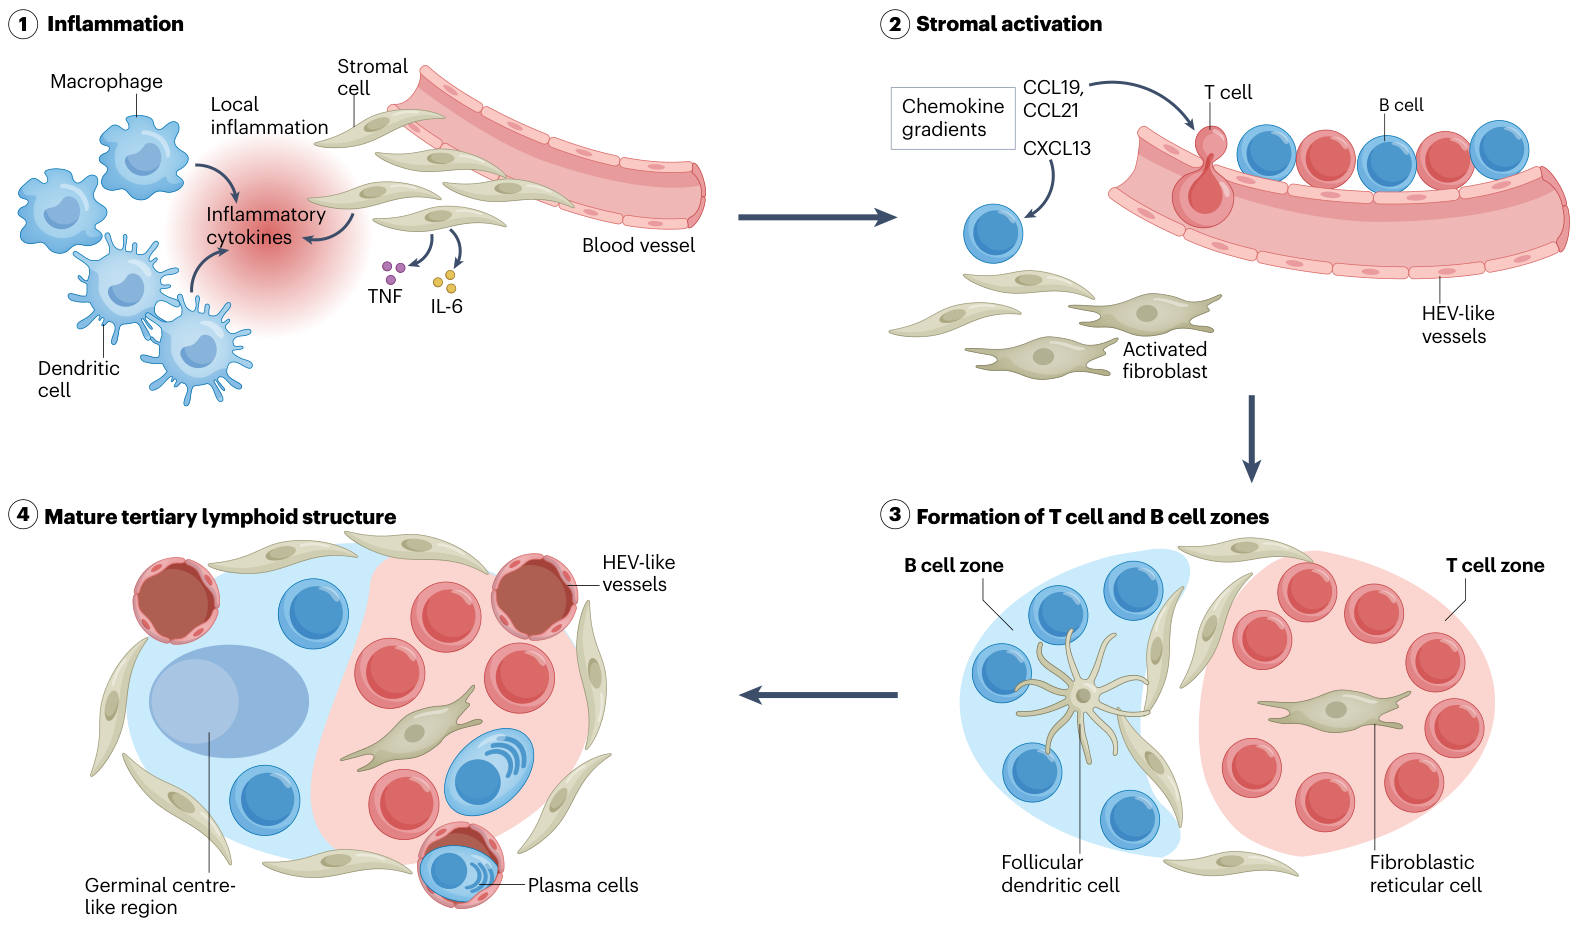
图2 · PDF第5页。一般过程示意,各阶段在真实组织中可以重叠。
在作者框架中,活化T、B细胞等提供LTα1β2或LIGHT,作用于内皮及基质细胞上的LTβR,推动NF-κB相关程序、淋巴组织趋化因子表达与组织维持。CCL19/CCL21和CXCL13等帮助安排T、B细胞的位置,基质网络进一步支持滤泡与生发中心功能(第6–8页)。
LIGHT除作用于LTβR外,还可通过HVEM参与免疫细胞共刺激。IL-33激活ILC2并提供淋巴毒素,是文章讨论的另一条联系组织损伤与TLS的通路;作者将其定位为依赖情境的补充来源(第7–8页)。
相关原始研究进一步区分单药与联合的作用:本次定点核对Sawada等2025年原始论文的摘要、图1相关结果,LTβR激动剂单药也可在所用小鼠模型诱导TLS;联合STING激活进一步增强免疫功能。这项研究分别观察TLS形成和联合治疗下的免疫功能增强。该原始论文尚未完整精读。
两阶段模型与研究局限
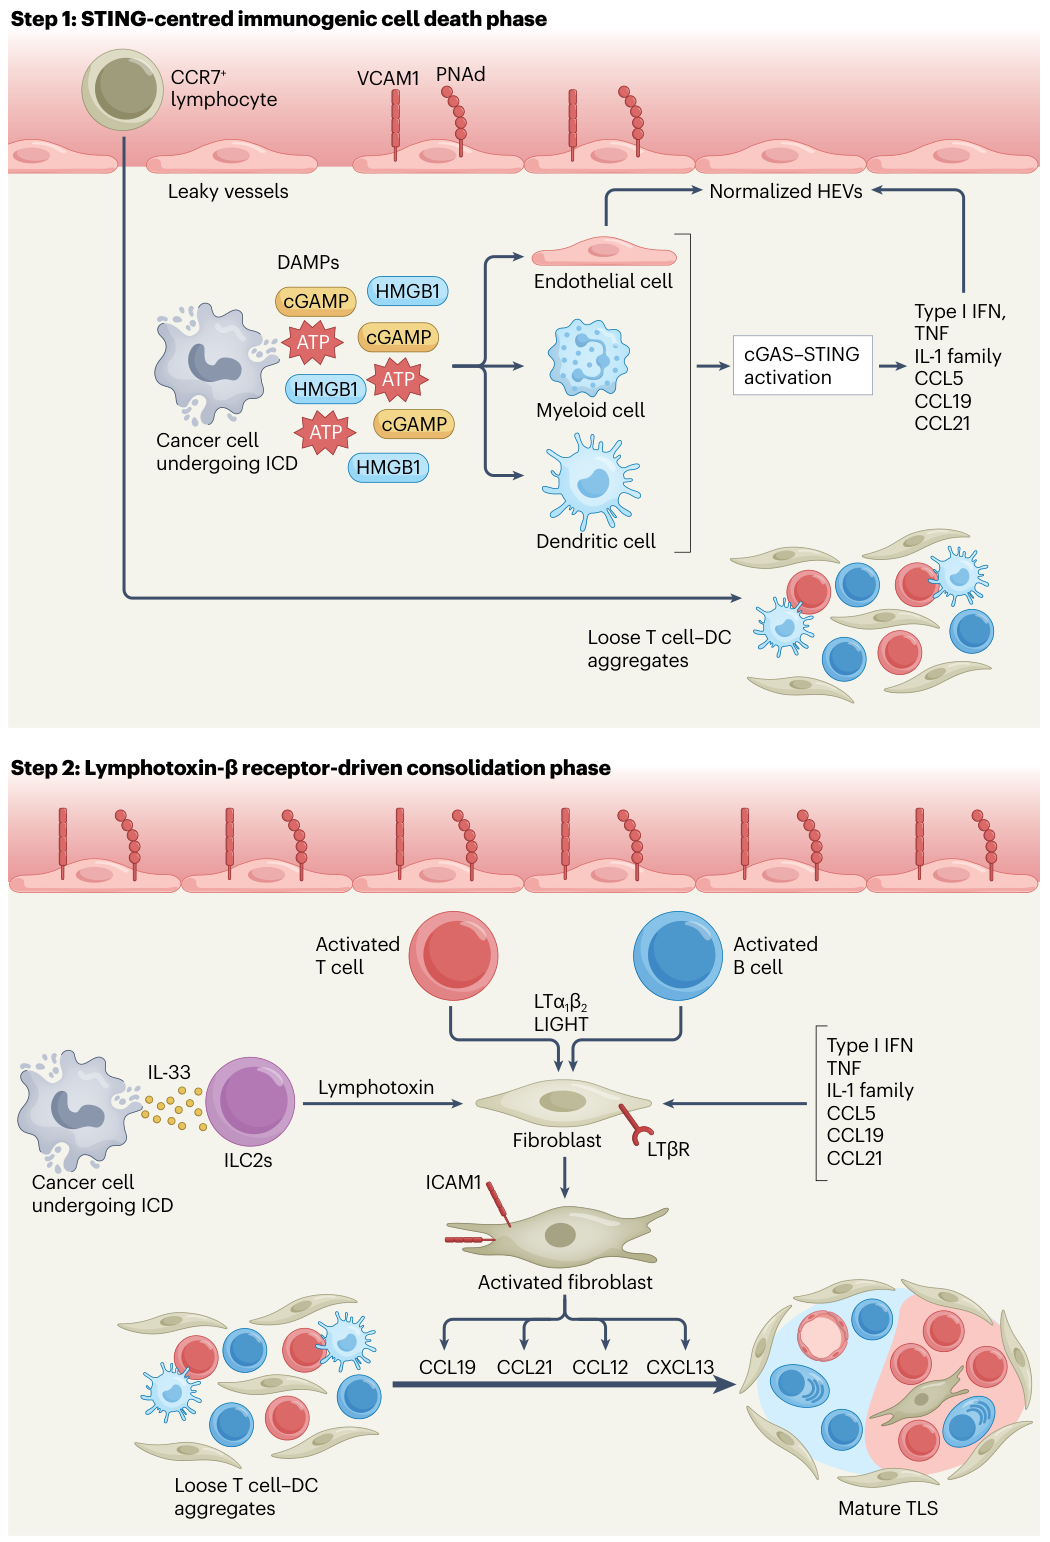
图3 · PDF第8页,作者提出的整合模型。原图及图注写“CCL12”,第6–7页正文写“CXCL12”,两者不一致,该标注尚待核实。
这个模型区分免疫启动与局部免疫组织的维持。已有的STING、血管、淋巴毒素和成纤维细胞研究,为不同环节提供了支持;ICD起始、内皮变化、基质重塑、成熟TLS到肿瘤特异性保护的连续因果链仍待建立(第6–8页)。
| 作者连接的环节 | 现有证据与缺口 |
|---|---|
| ICD与血管重塑 | 治疗后HEV/TLS增加可能涉及多种治疗作用;直接体内因果关系尚待建立 |
| STING与TLS成熟 | STING单路可支持早期募集环境;不同模型中的B细胞组织化与后续功能需要分开看 |
| LTβR与成熟结构 | 有相关干预研究支持,但本文第3页也列出特定情境下不依赖LTβR的TLS形成 |
| ER应激与STING持续活动 | 相关机制部分来自STING运输缺陷模型;其在ICD驱动肿瘤TLS中的作用仍属作者推演 |
| 成熟TLS与临床获益 | 结构、位置、癌种和细胞组成影响意义;人为诱导TLS的临床获益尚待验证 |
依据:第3–9页。各项研究的人群、干预和成熟度终点存在差异,临床效应需要按具体情境验证。
TLS异质性与功能
作者设想将ICD相关治疗与组织化信号结合,目标是让免疫细胞在肿瘤局部形成更持久的功能网络。研究关注TLS数量、细胞来源、空间关系和持续时间如何共同影响功能(第9页)。
TLS并非在所有环境都有益。它们在肿瘤内还是周边、是否具生发中心、是否富集抑制性细胞,都可能改变其意义;在部分自身免疫疾病中,还与组织损伤相关。本文支持继续检验成熟度和空间位置作为生物标志物的价值,尚未建立可直接用于患者选择或联合用药的通用规则。
相关原始研究
以下按检验核心框架的价值排序,题录来自本文参考文献。除第一项的定点核对和第二项的摘要/题录核对外,均为综述转述;八篇原始全文均尚未核查完成。
- Sawada等,Nature Immunology,2025(ref.58):Simultaneous STING and lymphotoxin-β receptor activation induces B cell responses in tertiary lymphoid structures to potentiate antitumor immunity。重点:单药与联合、TLS形成与功能成熟是否分离。原文
- Chelvanambi等,JITC,2021(ref.47):STING agonist-based treatment promotes vascular normalization and tertiary lymphoid structure formation in the therapeutic melanoma microenvironment。重点:非经典TLS的结构定义。DOI
- Zhao等,Science Immunology,2024(ref.66):cGAS-activated endothelial cell–T cell cross-talk initiates tertiary lymphoid structure formation。重点:内皮信号的细胞特异性与因果证据,原文尚未核查。
- Amisaki等,Nature,2025(ref.18):IL-33-activated ILC2s induce tertiary lymphoid structures in pancreatic cancer。重点:ILC2来源及胰腺癌情境能外推多远,原文尚未核查。
- Hua等,Cancer Cell,2022(ref.50):Cancer immunotherapies transition endothelial cells into HEVs that generate TCF1+ T lymphocyte niches through a feed-forward loop。重点:HEV与T细胞生态位是否足以代表成熟TLS,原文尚未核查。
- Zhang等,Cancer Cell,2024(ref.87):CCL19-producing fibroblasts promote tertiary lymphoid structure formation enhancing anti-tumor IgG response in colorectal cancer liver metastasis。重点:成纤维细胞、抗体功能与肝转移环境,原文尚未核查。
- Cabrita等,Nature,2020(ref.15):Tertiary lymphoid structures improve immunotherapy and survival in melanoma。重点:临床相关、混杂因素及机制证据各占多大权重,原文尚未核查。
- Shields等,Science,2010(ref.27):Induction of lymphoidlike stroma and immune escape by tumors that express the chemokine CCL21。重点:为何淋巴样组织化也可能伴随免疫逃逸,原文尚未核查。
主图与表格 · 3 张
fig-1.png · PDF 第 2 页
Fig. 1 | Key features of primary lymphoid organs, secondary lymphoid organs and tertiary lymphoid structures. Comparison of the cellular and tissue architecture of primary lymphoid organs, secondary lymphoid organs and tertiary lymphoid structures (TLSs). Primary lymphoid organs such as the thymus (left) and bone marrow (not depicted) are developmentally programmed immune organs responsible for lymphocyte development and maturation. By contrast, secondary lymphoid organs, such as lymph nodes (centre) and spleen (not depicted), are specialized immune structures that initiate and coordinate adaptive immune responses. Tertiary lymphoid structures (right) arise ectopically within peripheral tissues in response to chronic inflammatory cues and locally orchestrate immune responses in settings such as cancer, infection, autoimmunity and transplantation. Differences in structural organization, capsule formation, high endothelial venule presence and key molecular pathways involved in tissue development and maintenance for these structures are summarized in Table 1. DC, dendritic cell; FDC, follicular dendritic cell.
fig-2.png · PDF 第 5 页
Fig. 2 | Formation of tertiary lymphoid structures. Parts 1–4 depict the main steps involved in the formation of tertiary lymphoid structures (TLSs). Initially in the process of TLS formation (part 1), inflammation triggers the infiltration of innate immune cells (such as macrophages and dendritic cells) and promotes the release of pro-inflammatory cytokines (for example, tumour necrosis factor (TNF) and IL-6), activating stromal cells. Following this stromal activation (part 2), chemokine secretion (CCL19, CCL21 and CXCL13) promotes lymphocyte recruitment via high endothelial venule (HEV)-like vessels. Next (part 3), lymphocytes organize into T cell zones and B cell zones around fibroblastic reticular cells (FRCs) and follicular dendritic cells (FDCs), and finally (part 4), mature TLSs form. Mature TLSs feature segregated B cell follicles with germinal centres, T cell-dependent areas that contain dendritic cells, and peripheral HEV-like vessels, where plasma cell egress. These TLSs support adaptive immune responses in the tissue.
fig-3.png · PDF 第 8 页
Fig. 3 | A two-step model of how immunogenic cell death induces tertiary lymphoid structure formation. In step 1 (top), damage-associated molecular patterns (DAMPs), such as extracellular ATP and high-mobility group box 1 (HMGB1), as well as cGAMP released by cancer cells undergoing immunogenic cell death (ICD) activate dendritic cells (DCs), myeloid cells and endothelial cells, leading to cGAS–STING signalling and production of type I interferons (IFN), TNF, IL-1 family cytokines and chemokines including CCL5, CCL19 and CCL21. This inflammatory milieu promotes endothelial activation, vascular normalization with high endothelial venule (HEV)-like features (VCAM1 and PNAd expression), and recruitment of CCR7+ lymphocytes, resulting in loose perivascular T cell– DC aggregates within the tumour stroma. In step 2 (bottom), ICD-associated IL-33 and lymphotoxin signals provided by activated T cells, B cells and group 2 innate lymphoid cells (ILC2s) engage lymphotoxin β receptor (LTβR) on fibroblasts, driving their activation and upregulation of ICAM1 as well as the expression of the lymphoid chemokines CCL19, CCL21, CCL12 and CXCL13. Sustained production of these mediators, together with ongoing type I IFN, TNF and IL-1 family cytokine signalling, consolidates the loose aggregates into organized, mature tertiary lymphoid structures (TLSs) that contain segregated lymphocyte zones and specialized vasculature.
完整阅读记录与证据表
文献卡:ICD与TLS之间的免疫组织化
- Paper ID:p-0014-rev-immunogenic-cell-death-tertiary-lymphoid
- 标题:Immunogenic cell death and tertiary lymphoid structures: bridging tumour cell death and immune organization
- 作者:Rafal Hanc、Robin Demuynck、Dmitri V. Krysko
- 期刊:Nature Reviews Immunology;正式类型Perspective;2026-09-16在线发表。不是Nature主刊原始研究。
- DOI:10.1038/s41577-026-01356-5;出版社页面
- 分析日期:2026-09-18;来源:当天群分享,归入日常共读;无晨会日期。
- 技能:review-read、pdf、web-publish。
- 阅读范围:11页主PDF全读;正文第1–9页,参考文献第9–10页,共93条题录,声明第10–11页。原始论文的实际核读范围另见coverage.md。
- 图表:3主图、1表、2说明框,共6 PNG均核对;网页选3主图。清单见figures/README.md,实际边界见coverage.md。
- 状态:processing_status=analyzed(本篇观点文全文),human_review=pending。
一句话结论
作者将STING相关炎症/血管募集与LTβR相关基质组织化串成ICD连接成熟TLS的两阶段模型;支持来自不同研究环节,完整因果链和通用临床获益尚未建立。
研究问题与背景
ICD把抗原性与佐剂性结合,TLS把局部免疫细胞组织成结构。本篇问的是,前者的信号能否同时驱动内皮与基质改变,使肿瘤局部形成支持T、B细胞反应的组织环境。第2页指出TLS可有T/B区、FDC网络和生发中心;FDC为间充质来源,与经典造血来源DC不同。
贡献与比较对象
主要贡献是跨细胞死亡、血管和基质文献提出概念连接;未报告本文新开展的患者队列、动物试验或头对头试验。图1比较淋巴结构,图2画一般形成过程,图3提出两阶段假说;三图均为示意图,非新增实验结果。
范围与选文方法
叙述性观点整合;未报告检索式、数据库、时间窗、纳排标准、偏倚评估或合并统计。材料覆盖肿瘤TLS、免疫原性死亡、STING、HEV、LTβR和成纤维细胞,部分来自自身免疫/炎症研究。综述范围属于作者选取的叙述性整合。
分类体系与代表工作
| 主张 | 条件与证据边界 | PDF位置 | 依据类型 | 核对状态 |
|---|---|---|---|---|
| 成熟TLS区别于免疫细胞聚集 | T/B分区、FDC、生发中心与功能应分层 | 2–3、6页;图1、表1 | 正文/图表及转述 | 本篇已核 |
| ICD提供抗原与佐剂信号 | 钙网蛋白暴露、ATP/HMGB1释放;完整ICD的评价还需功能性免疫证据 | 3–4、6页;Box 2 | 转述 | 本篇已核;被引共识未全读 |
| cGAS–STING连接胞质DNA与Ⅰ型IFN | cGAS感知DNA;cGAMP作用于STING;慢性信号可能相反 | 4页 | 转述 | 本篇已核 |
| STING干预支持血管与早期细胞聚集 | ref.47为小鼠黑色素瘤,非患者疗效;缺组织化B滤泡和生发中心 | 4、6页 | 转述 | 原始摘要/题录定点核对,未全读 |
| ICD诱导体内HEV分化 | 作者在第6页明确说直接因果仍待建立 | 5–6页 | 作者假说与限制 | 已核,网页保留 |
| LTβR信号组织基质与成熟TLS | ref.58支持所测条件下的联合功能 | 6–8页;图3 | 转述与模型 | 原始摘要、图1相关结果定点核对 |
| CAF获得组织者功能 | 组织者趋化因子、黏附分子与淋巴细胞反馈;研究背景异质 | 7–8页 | 转述 | 本篇已核;原文待读 |
| IL-33–ILC2补充淋巴毒素 | 作者说明为情境依赖的补充路线 | 7–8页;ref.18 | 转述 | 不写成普遍主导来源 |
| TLS与预后/治疗响应关联 | 癌种、位置和成熟度影响方向;非肿瘤场景可致病 | 9页 | 转述及展望 | 不写成临床干预有效 |
局限与争议
作者明确指出
- 第6页:ICD信号与体内HEV分化的直接因果仍未建立;现有治疗后观察主要提供关联线索。
- 第4页:STING净作用取决于细胞类型和时间;持续或失调活动可促肿瘤。
- 第3页:特定情境下IL-17可支持不依赖LTβR的TLS形成。第7页“需要第二阶段”的强措辞应限定于模型,不外推为所有TLS的必然规律。
- 第8–9页:ILC2贡献具有情境依赖;TLS结构、位置及肿瘤类型影响临床意义。
定点核对与AI判断
- ref.58的必要性措辞过强:本次核对Sawada等原文摘要、图1相关结果,LTβR单药也诱导TLS;不将联合优势外推为普遍必要条件。未全读该文。
- 图3内部不一致:第8页图及图注为CCL12,第6–7页正文为CXCL12。已在源PDF和裁图中视觉确认;未发现可依据的作者更正,不擅自修改原图、不确认两者可互换。
- 第6–7页引文连接不够清楚:两路联合相关论述主要指ref.58,但下一句富B细胞TLS/高亲和抗体描述标ref.18(IL-33–ILC2胰腺癌研究)。网页分别叙述,未将ref.18充当直接STING+LTβR联合试验的证据;引用归属仍待原文逐一核对。
- 图3信号压缩:ATP/HMGB1/cGAMP在图中汇入同一框,实际作用路径不同;IL-33通过ILC2等间接连接组织化,LTβR由其相应配体激活。
- ER应激外推:第4–5页的STING持续激活机制部分来自运输缺陷/自炎症模型(ref.48),作者用可能性连接到ICD–TLS;不得改写为肿瘤中已证实的完整机制。
- 表1概括范围:HEV等特征的次级淋巴器官列与图1的淋巴结示例一起理解,未将其泛化为所有次级器官的统一解剖规则。表中概括是否适用于每类器官,未逐项追读原始来源。
- 证据层级:第7页ref.70报告单例NSCLC的空间转录组线索,患者层面的验证范围有限。本文未单独全文核查该引用。
优先追读清单(原始全文均尚未核查完成)
按检验本文框架的价值排序,完整题名与链接同时见reading.md末节:
| 优先级 | 题名/原始研究 | 要补的问题 | 本次覆盖 |
|---|---|---|---|
| 1 | Simultaneous STING and lymphotoxin-β receptor activation induces B cell responses in tertiary lymphoid structures to potentiate antitumor immunity;Sawada,2025,ref.58 | 单药/联合与成熟功能的差别 | 摘要及图1相关结果定点;全文尚未核查 |
| 2 | STING agonist-based treatment promotes vascular normalization and tertiary lymphoid structure formation in the therapeutic melanoma microenvironment;Chelvanambi,2021,ref.47;DOI 10.1136/jitc-2020-001906 | 非经典TLS定义和干预依赖 | 摘要/题录;全文尚未核查 |
| 3 | cGAS-activated endothelial cell–T cell cross-talk initiates tertiary lymphoid structure formation;Zhao,2024,ref.66 | 内皮特异性因果 | 尚未核查 |
| 4 | IL-33-activated ILC2s induce tertiary lymphoid structures in pancreatic cancer;Amisaki,2025,ref.18 | ILC2贡献与情境 | 尚未核查 |
| 5 | Cancer immunotherapies transition endothelial cells into HEVs that generate TCF1+ T lymphocyte niches through a feed-forward loop;Hua,2022,ref.50 | HEV与TLS区分 | 尚未核查 |
| 6 | CCL19-producing fibroblasts promote tertiary lymphoid structure formation enhancing anti-tumor IgG response in colorectal cancer liver metastasis;Zhang,2024,ref.87 | CAF与抗体功能 | 尚未核查 |
| 7 | Tertiary lymphoid structures improve immunotherapy and survival in melanoma;Cabrita,2020,ref.15 | 临床相关和因果区别 | 尚未核查 |
| 8 | Induction of lymphoidlike stroma and immune escape by tumors that express the chemokine CCL21;Shields,2010,ref.27 | 免疫逃逸反例 | 尚未核查 |