核心框架
mRNA癌症疫苗既提供肿瘤抗原,也通过RNA本身和递送载体影响免疫环境。抗原在哪里表达、由什么细胞呈递、伴随多强的炎症以及刺激持续多久,都会参与决定后续反应。
这篇Perspective将相关研究整合为四条免疫调节轴:先天感知、抗原呈递、适应性免疫记忆和训练免疫。作者希望把分子与制剂参数连接到可测量的免疫状态,再依据肿瘤类型、治疗阶段和联合方案调整设计(PDF第1–3页)。
文章于2026年6月19日在线发表,主要讨论非复制型mRNA与脂质递送系统,也涉及未修饰RNA脂质复合物(RNA-LPX)和自扩增RNA。它属于观点综述,未报告系统检索流程或新的临床试验。期刊原文
RNA与载体共同参与免疫反应
mRNA进入细胞后,经历内吞、内体逃逸、翻译和抗原加工。被转染的抗原呈递细胞可以将自身合成的抗原通过MHC-I呈递;其他细胞释放的抗原被摄取后,还可进入交叉呈递途径。MHC-II相关呈递与CD4 T细胞帮助也参与适应性反应(第2–3、6–7页)。
RNA可受到TLR7/8、RIG-I等感知,转录过程中形成的双链RNA杂质也影响感知与翻译。脂质载体除了保护RNA和协助递送,其组成还会影响细胞摄取、组织分布和炎症通路。不同制剂的这些作用各有差异。
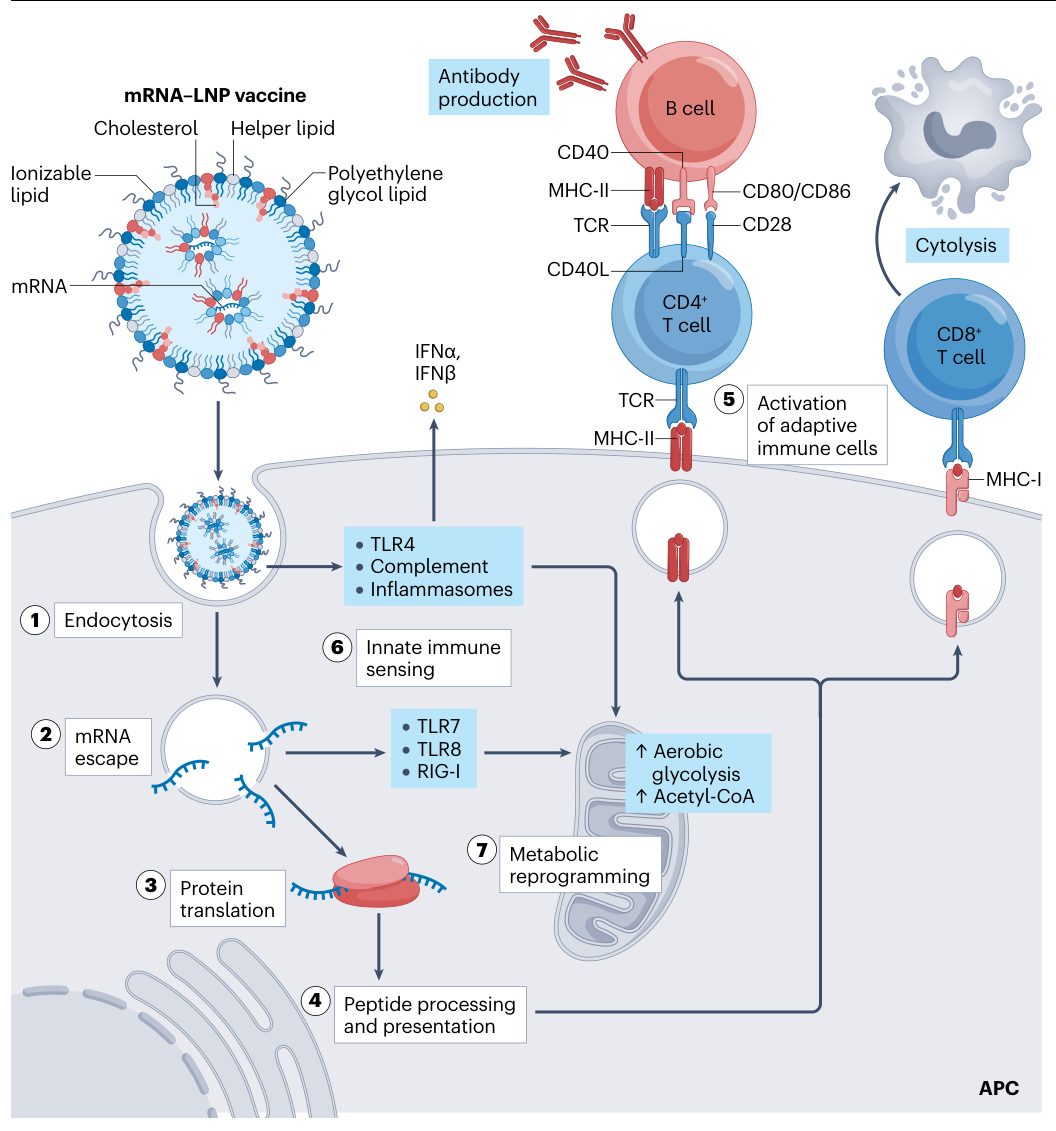
图1 · PDF第3页。作者汇总的mRNA癌症疫苗作用过程。
四条免疫调节轴
| 免疫轴 | 主要问题 | 影响因素与观察方向 |
|---|---|---|
| 先天免疫感知 | 佐剂作用与免疫病理如何平衡 | RNA化学修饰、杂质和载体组成;观察局部与全身炎症、抗原表达及T细胞启动 |
| 抗原呈递 | 抗原暴露如何形成有效免疫 | 递送组织、呈递细胞、共刺激和细胞因子;观察呈递质量及抗原特异性反应 |
| 适应性免疫记忆 | 如何形成持久、具功能的免疫细胞群 | 抗原质量、持续时间、免疫优势性和加强免疫;观察克隆持续性、表型与功能 |
| 训练免疫 | 先天细胞的长期状态如何影响后续反应 | 代谢与表观遗传改变、既往刺激和肿瘤环境;观察再刺激反应与组织免疫状态 |
依据:第2–9页。右栏归纳了作者的设计变量与评价方向。
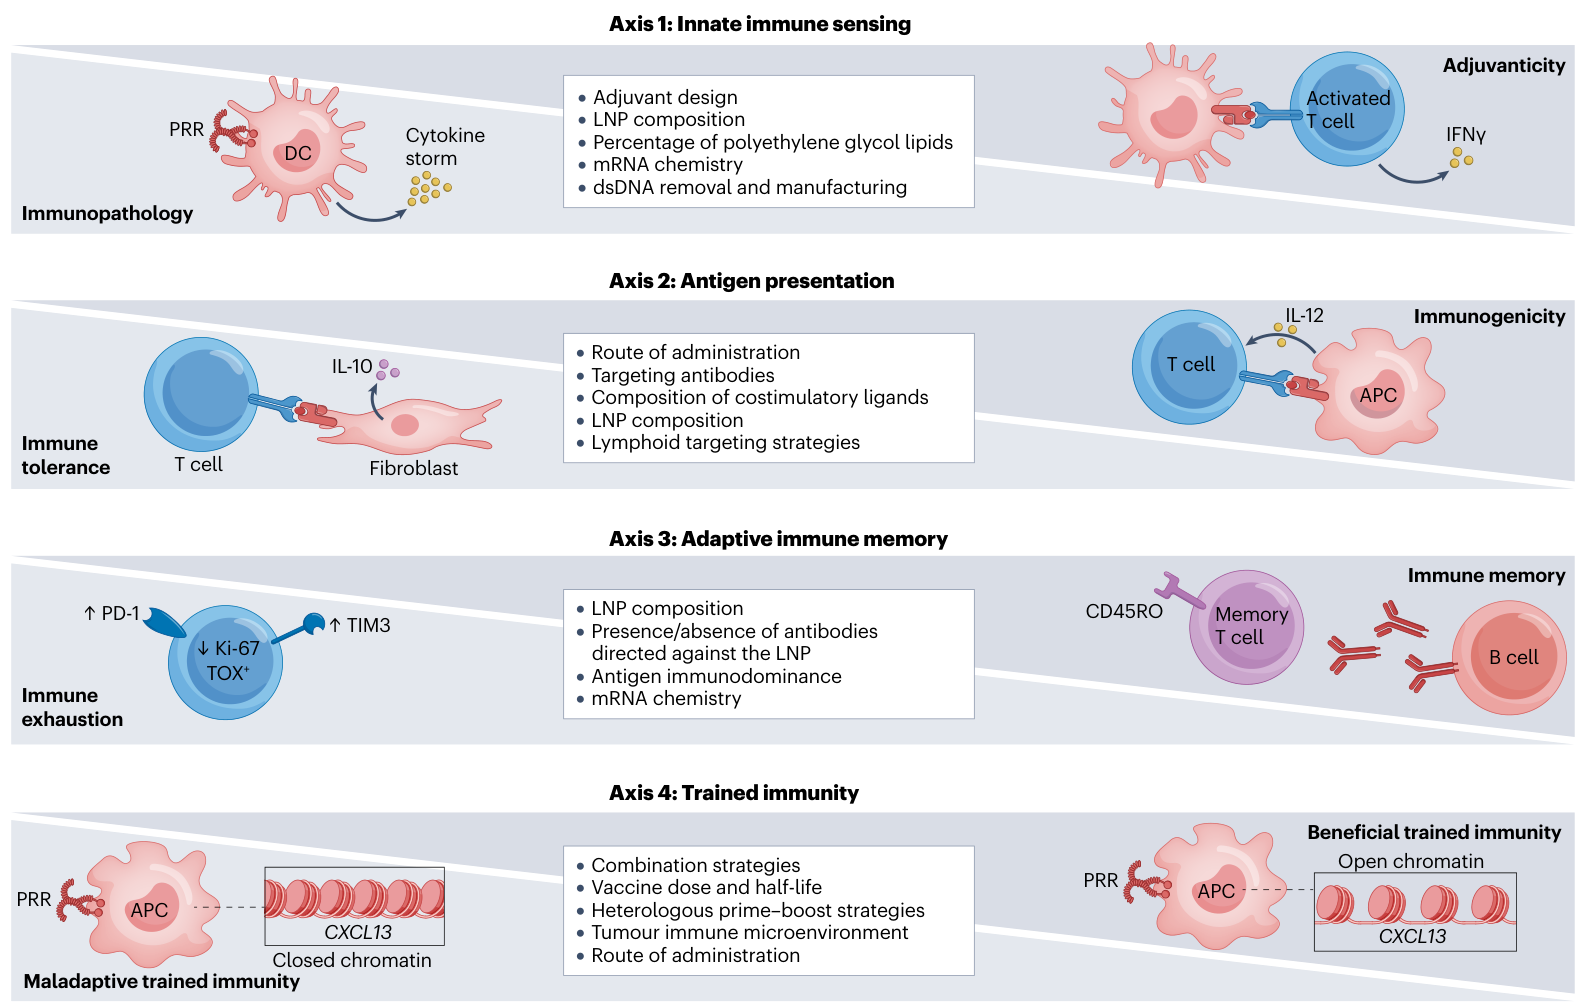
图2 · PDF第5页。原图第一轴写作“dsDNA removal”,正文第3–4页讨论的是dsRNA杂质清除;此处保留原图并注明差异。图中的IFNγ为II型干扰素,与正文重点讨论的I型IFN需区分。
先天感知:强度、位置和持续时间
早期、适当的炎症有助于抗原呈递细胞成熟和免疫启动;过强或过久的信号则可能抑制翻译、加重全身炎症或激活负反馈。作者因此关注“适宜的激活窗口”(第3–6页)。
核苷修饰通常可降低RNA的部分先天感知并改善翻译,但修饰RNA仍可产生免疫刺激。未修饰RNA平台也已有临床免疫原性证据。两者的取舍取决于表达需求、递送方式及预期炎症,而非一个固定的优劣排序。
聚乙二醇(PEG)化有助于制剂稳定和改变循环行为,也会影响细胞摄取;抗PEG抗体可能进一步改变载体清除。可离子化脂质与辅助脂质同样参与组织分布和炎症调节。这些变量相互影响,单独改变一项时需要同时观察递送与免疫反应。
抗原呈递:细胞环境决定刺激质量
抗原表达量之外,呈递细胞是否具备共刺激、能否进入淋巴组织,以及周围的细胞因子环境,都影响T细胞启动。作者讨论将抗原送达专业抗原呈递细胞,特别是具交叉呈递能力的cDC1,并关注淋巴组织与肿瘤局部的递送(第6–7页)。
不同靶向配体和给药途径具有各自的分布特征。例如甘露糖相关靶向可覆盖多类髓系细胞,具体细胞选择性仍需实测。抗原耐受在本文中主要作为情境相关的设计风险讨论;作者说明,现有癌症mRNA疫苗临床研究尚未将其确立为常见结局。
适应性记忆:同时观察数量和功能
作者强调T细胞反应的广度、克隆持续性和效应功能。持续刺激与终末耗竭之间的机制主要来自慢性感染和肿瘤研究;重复接种导致癌症疫苗相关T细胞耗竭,目前仍属情境相关的风险假设。具有TCF1等特征的祖细胞样T细胞群,可为后续效应细胞提供补充(第7–8页)。
CD4帮助、B细胞反应和表位扩展也是框架的一部分。抗肿瘤抗体、抗载体抗体及调节性B细胞的作用不同,需要分别评价;肿瘤mRNA疫苗中这些成分的临床贡献仍有待界定。
训练免疫:先天细胞的代谢与表观遗传状态
训练免疫指先天细胞经历刺激后,代谢和染色质状态发生较持久改变,从而影响再次刺激时的反应。本文讨论成熟髓系细胞中的外周训练,以及骨髓祖细胞层面的中枢训练,并把它们纳入疫苗设计(第8–9页)。
相关人体线索主要来自感染性疾病疫苗。例如Simonis等研究在SARS-CoV-2 mRNA疫苗接种者的单核细胞来源巨噬细胞中,观察到H3K27ac等改变及再刺激反应。癌症疫苗能否在人体肿瘤内形成持久、具抗肿瘤功能的训练状态,仍是本文提出的开放问题。被引原始研究
四类可调信号
四条轴描述免疫反应的不同维度;作者另用四类信号组织设计变量,两者相互关联(第10–12页)。
| 信号 | 内容 | 与其他信号的联系 |
|---|---|---|
| 1:抗原 | 抗原身份、质量、呈递与识别,以及暴露量和持续时间 | 决定反应针对什么,以及刺激如何随时间变化 |
| 2:共刺激 | 抗原呈递细胞与T细胞之间的激活、存活和分化信号 | 与抗原识别共同影响有效启动 |
| 3:细胞因子环境 | 局部细胞因子与趋化因子 | 影响T细胞分化、募集和效应功能 |
| 4:训练免疫状态 | 先天细胞及相关组织细胞的代谢与表观遗传状态 | 影响机体如何响应后续疫苗、肿瘤抗原及联合治疗 |
原文表1把RNA修饰、载体、抗原、递送与联合治疗等参数映射到免疫轴。“预期结果”和“临床意义”栏包含设计目标与潜在转化价值,各行所依据的研究阶段不同。
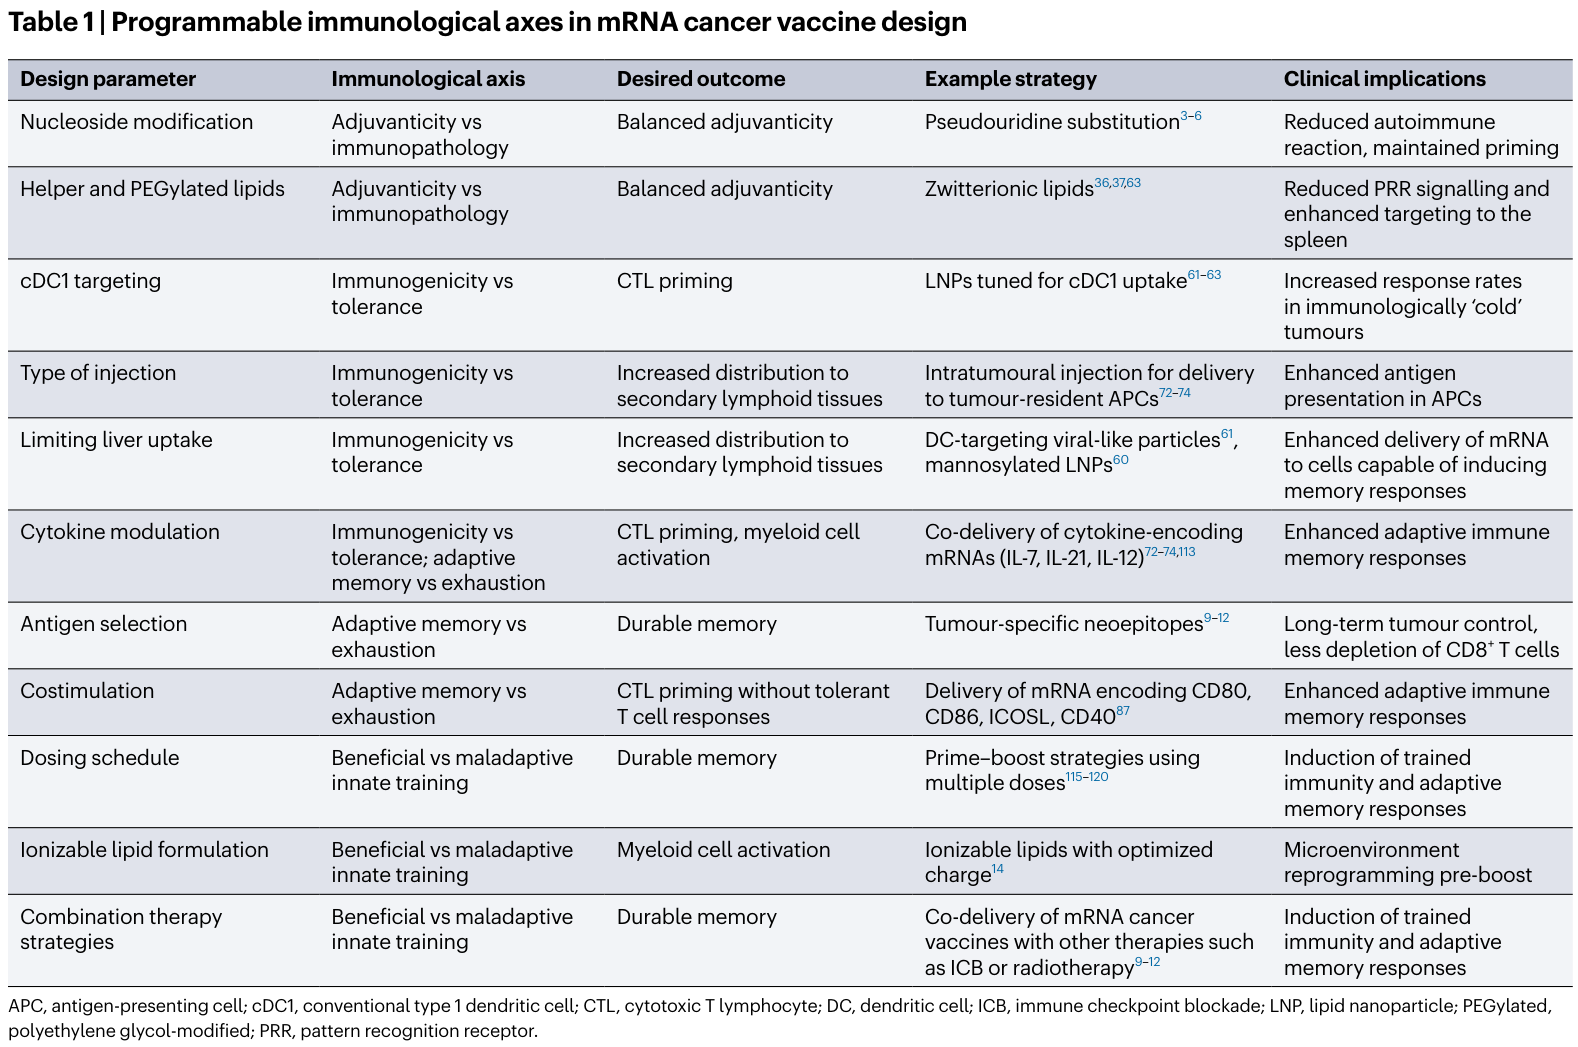
表1 · PDF第4页。作者整理的参数与预期作用。
临床研究提供了哪些证据
本文所引研究支持抗原特异性免疫和联合治疗的临床探索,证据层级可作如下区分(第4、7、10、12页;对应原文参考文献9–12、125)。
| 研究 | 设计与观察 | 结果的适用范围 |
|---|---|---|
| KEYNOTE-942,2024年报告 | 切除后高风险黑色素瘤,随机Ⅱb期;V940联合帕博利珠单抗107例,对照单用帕博利珠单抗50例 | 复发或死亡HR 0.561;试验按单侧α=0.10设计,2023年会议报告单侧P=0.0266,达到Ⅱb期预设标准;2024年报告95% CI 0.309–1.017、双侧P=0.053,置信区间跨1 |
| 胰腺癌个体化RNA疫苗,2023年报告及2025年随访 | Ⅰ期术后序贯方案包括阿替利珠单抗、autogene cevumeran和化疗;16名接种者中8名出现所定义的疫苗诱导T细胞反应 | 同一队列延长随访,观察到多年持续的功能性T细胞;反应者与非反应者的复发比较为非随机分组,属于关联性结果 |
| Lipo-MERIT,2020年报告 | 晚期黑色素瘤Ⅰ期试验的探索性中期分析;共享肿瘤抗原RNA-LPX,单用或联用PD-1阻断 | 提供抗原特异性CD4/CD8反应及临床活性的早期线索,单用和联合队列属于探索性观察 |
| BNT211-01,2023年报告 | CLDN6靶向CAR T细胞联合或不联合CARVac的Ⅰ期探索 | CARVac使用编码CLDN6的尿苷mRNA-LPX,旨在扩增CAR T细胞;疫苗的独立增益仍需专门比较 |
来源:KEYNOTE-942、胰腺癌Ⅰ期、同队列随访、Lipo-MERIT、BNT211-01。表内以本文引用的报告版本为主;KEYNOTE-942另核对2023年ASCO原始摘要及作者设计幻灯(合集PDF第72页)。原始研究仅定点核查摘要、相关段落或上述设计页,完整统计方案及长期结局仍待进一步核查。
激活窗口与围手术期设想
图3用概念曲线表示免疫启动不足、适宜激活和过度激活三个区域。窗口位置取决于肿瘤、患者免疫背景及制剂。图中的配方标签概括了若干可能影响因素,其作用方向仍需结合具体体系判断(第10页)。
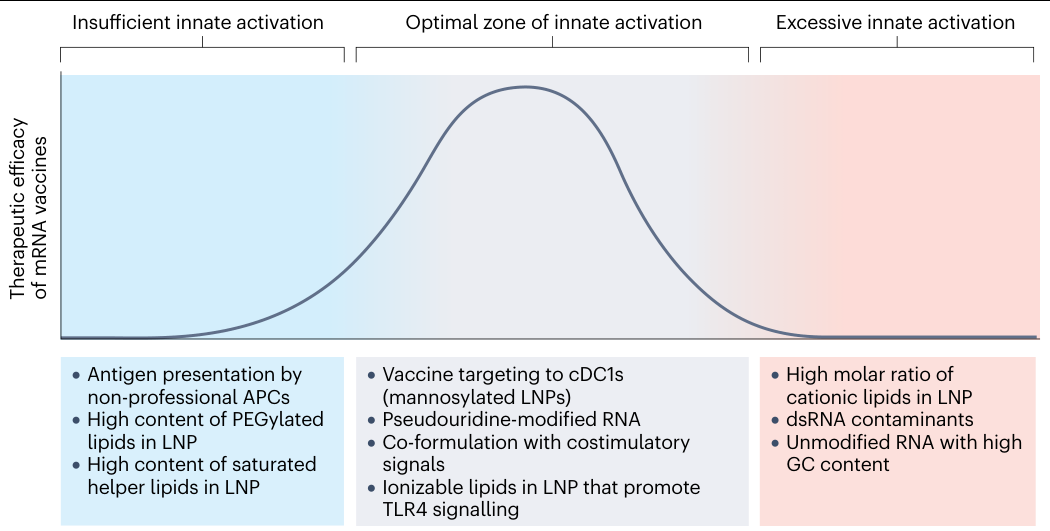
图3 · PDF第10页。概念示意,曲线没有实验测量刻度。
作者进一步提出围手术期的异源初免—加强设想:先使用共享肿瘤抗原疫苗,术后依据肿瘤抗原及免疫状态设计个体化加强疫苗,并考虑与检查点阻断、细胞治疗等配合。这一思路将早期免疫启动与后续抗原特异性记忆联系起来(第10–12页)。
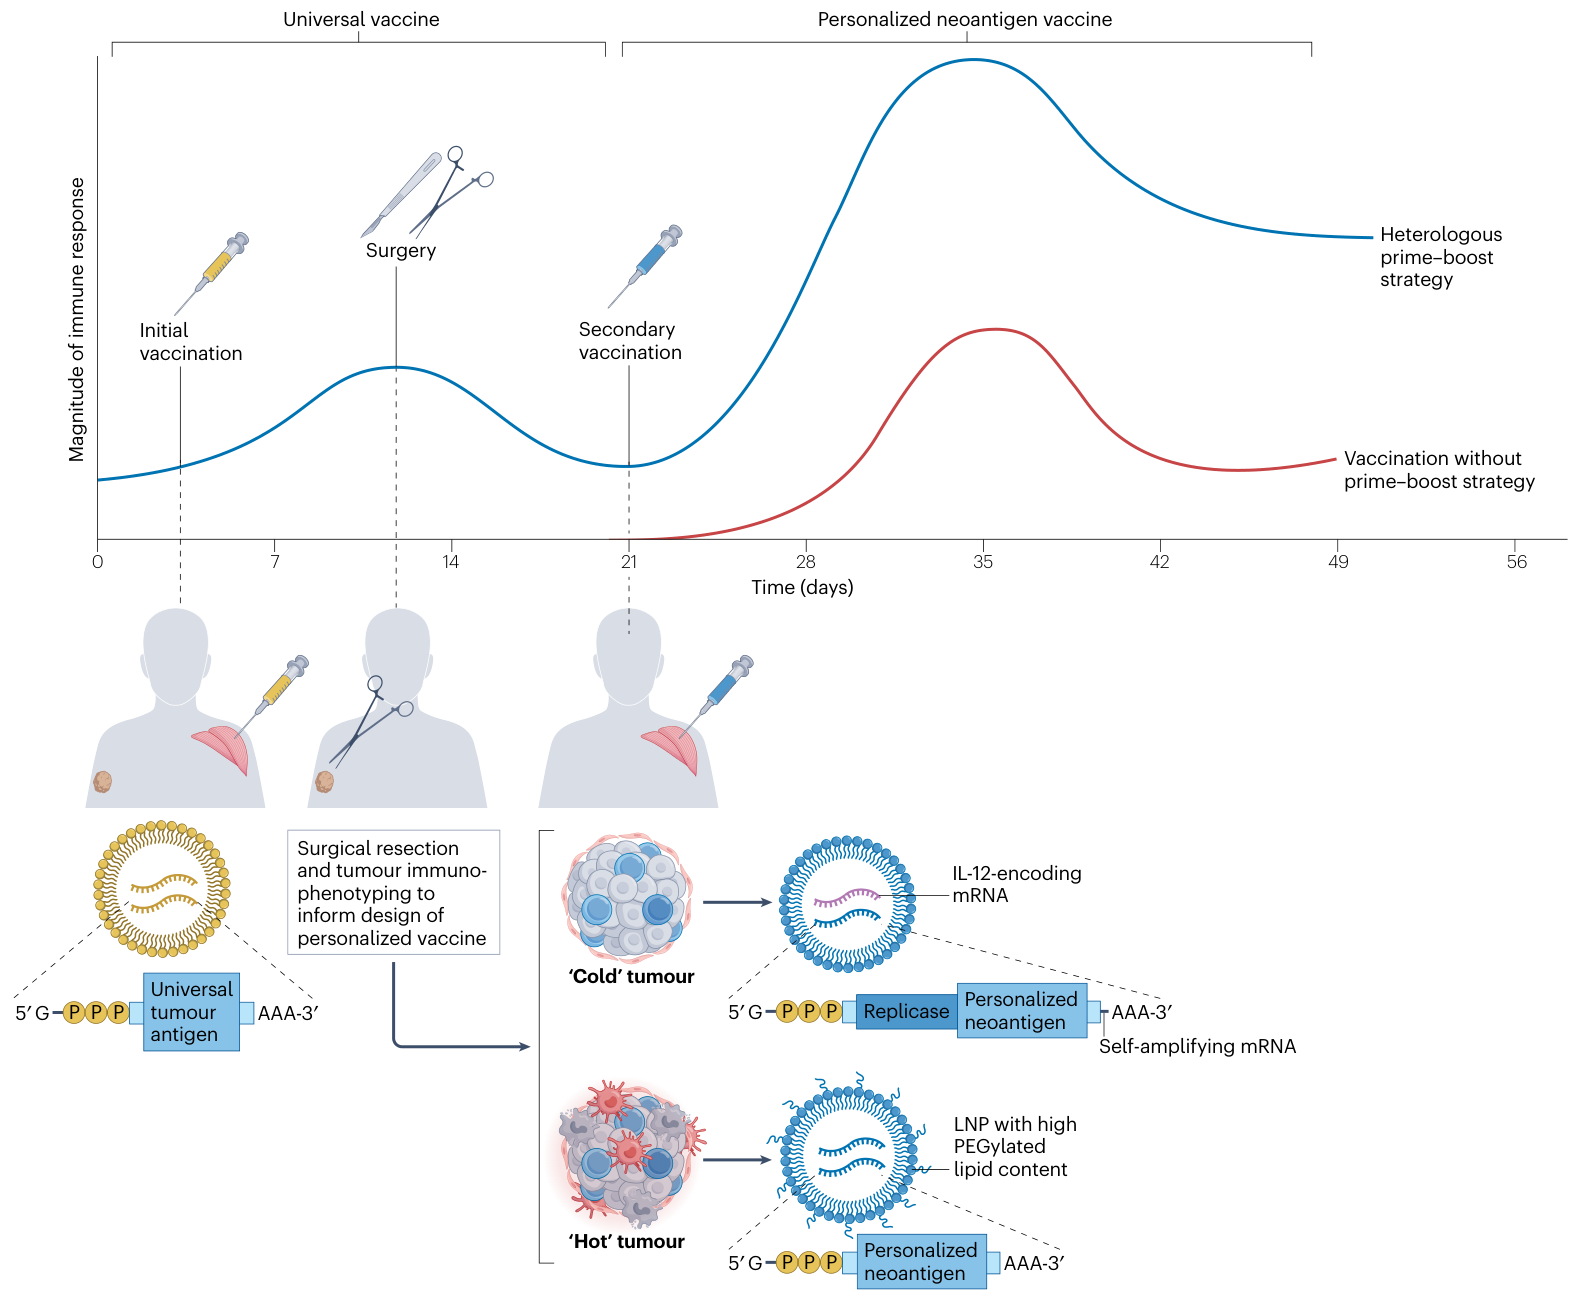
图4 · PDF第11页。作者明确标为假设模型;曲线、日期及冷热肿瘤对应制剂均为示意安排。
局限与待解问题
这套框架整合了多种RNA平台、制剂、物种和治疗场景。各类证据的成熟度不同,四条轴及四类信号尚无统一的临床量化尺度或优化阈值,图4所示完整时序也有待前瞻比较。
训练免疫对人体肿瘤控制的持续贡献、抗原表达时间与功能性记忆之间的关系、不同免疫背景下的联合治疗时序,是主要开放问题。免疫优势性相关讨论还引用了预印本(参考文献79),其证据需随正式研究更新。
原文部分图文与引文衔接存在差异:图2的dsDNA标注已在图旁说明;第12页将CARVac归入自扩增mRNA,与被引原始论文的平台描述不同;第9页将参考文献99用于“临床前模型、CXCL13及28天”表述,而该原始研究重点是人接种后的巨噬细胞表观遗传记忆。本解读对后两项采用原始研究中实际核到的内容,详细依据存于阅读记录。
优先追读文献
以下7篇按临床证据与核心机制的相关性排列。均尚未完成全文及附件核查;前6篇本次核对了摘要或特定段落,第7篇仅据综述转述。
- Weber等,KEYNOTE-942,Lancet 2024。DOI:进一步核对完整统计方案与长期结局。
- Rojas等,胰腺癌个体化RNA疫苗,Nature 2023。DOI:核查反应者定义和联合治疗背景。
- Sethna等,同一胰腺癌队列的长期T细胞随访,Nature 2025。DOI:区分实际随访与克隆寿命模型估计。
- Sahin等,Lipo-MERIT,Nature 2020。DOI:核查共享抗原平台与不同队列的比较条件。
- Simonis等,mRNA接种后巨噬细胞表观遗传记忆,Molecular Systems Biology 2025。DOI:核查采样、体外分化及再刺激实验。
- Mackensen等,BNT211-01,Nature Medicine 2023。DOI:核查CARVac对CAR T细胞扩增的作用。
- McCarron等,多表位RNA疫苗的免疫优势性研究,bioRxiv预印本。DOI:尚未核查原文,追踪正式发表及可重复性。
主图与表格 · 5 张
Figure 1 · PDF 第 3 页
Fig. 1 | An mRNA cancer vaccine cycle. The components of a messenger RNA (mRNA) vaccine are illustrated, comprising mRNA and the four components of a lipid nanoparticle (LNP): ionizable lipid, cholesterol, helper lipid and polyethylene glycol lipid. The LNP encapsulates the mRNA to prevent its degradation in the bloodstream. Upon endocytosis of the mRNA cancer vaccine by an antigen-presenting cell (APC) (1), the LNP facilitates endosomal release of the mRNA into the cytoplasm (2), where it is translated to protein (3). This protein can be secreted to act as an exogenous source of antigen, or it can be processed intracellularly for peptide loading onto MHC molecules (4). The result is antigen presentation at the cell surface and activation of adaptive immune cells (5). The mRNA cancer vaccine itself is not immunologically ‘silent’ as the LNP and mRNA components can activate innate immune sensing pathways (6), such as Toll-like receptor 4 (TLR4), TLR7, TLR8, complement, inflammasomes and RIG-I. The extent of activation is governed by factors outlined in axis 1 (adjuvanticity vs immunopathology) of our immunological framework (see main text and Fig. 2), such as manufacturing, LNP composition and mRNA chemistry. Activation of these innate immune pathways results in the release of type I interferon (IFN) into the tumour microenvironment, which, in addition to other inflammatory functions, facilitates metabolic reprogramming of the APC to favour aerobic glycolysis and production of acetyl-Co-A (7). These metabolic changes are necessary for the induction of trained immune responses. TCR, T cell receptor.
Figure 2 · PDF 第 5 页
Fig. 2 | An immunological axes framework for mRNA cancer vaccines. The four panels illustrate the four immunological axes that determine the efficacy of messenger RNA (mRNA) cancer vaccines: innate immune sensing, antigen presentation, adaptive immune memory and trained immunity. Within each axis, opposing immunological forces operate: adjuvanticity vs immunopathology, immunogenicity vs immune tolerance, immune memory vs immune exhaustion, and beneficial vs maladaptive trained immunity. The central box within each panel represents the programmable design features of mRNA cancer vaccines that can be modified to balance each axis. Axis 1: innate immune sensing through pattern recognition receptor (PRR) signalling, for example, on dendritic cells (DCs), influences the balance between immune activation (adjuvanticity) through antigen presentation to T cells and immunopathology, for example, through excess production of pro-inflammatory cytokines such as interferon-γ (IFNγ). This axis can be tuned through lipid nanoparticle (LNP) composition including the density of PEGylated lipids, mRNA chemistry (mainly nucleoside modification), vaccine manufacturing protocols and addition of vaccine adjuvants. Axis 2: antigen presentation to T cells regulates immunogenicity vs immune tolerance, which can be tuned by the route of administration, by provision of costimulatory ligands or by antibodies and LNPs that target the vaccine construct to professional antigen-presenting cells (APCs) such as DCs rather than non- professional APCs such as fibroblasts. Axis 3: the adaptive immune response can result in either memory or exhaustion, which can be modulated by tuning antigen immunodominance or epitope spreading through LNP composition and mRNA chemistry. Anti-carrier B cell responses, such as polyethylene glycol (PEG)-specific antibodies, can promote antigen clearance, which blunts memory responses. Axis 4: trained immunity, mediated by epigenetic and metabolic changes in innate immune cells, can either enhance or suppress beneficial (or suppressive) programmes of immune gene expression (such as CXCL13, which is required for productive B cell responses). These pathways can be modulated using heterologous prime–boost strategies or alternative combination therapies and depend on the vaccine dose and half-life, the route of administration and the tumour microenvironment. dsDNA, double-stranded DNA.
Table 1 · PDF 第 4 页
Table 1 | Programmable immunological axes in mRNA cancer vaccine design. Full table, title and abbreviations are included in the archived image.
Figure 3 · PDF 第 10 页
Fig. 3 | Tuning innate immune sensing for balanced adjuvanticity. This figure illustrates the concept of an ‘optimal zone’ of innate immune activation that can be achieved through design considerations of the messenger RNA (mRNA) vaccine. Factors such as high ratios of cationic lipids in lipid nanoparticles (LNPs), unmodified RNA and contaminating double-stranded RNA (dsRNA) in the mRNA vaccine can result in excessive immune activation, causing toxicities such as cytokine release syndrome. By contrast, immune tolerance can be induced through vaccine designs that have a high content of polyethyleneglycol- modified (PEGylated) lipids or high levels of saturated helper lipids (such as 1,2-distearoyl-sn-glycero-3-phosphocholine) in the LNP or that target antigen to non-professional antigen-presenting cells (APCs). The ‘optimal zone’ of activation, which will differ depending on tumour, patient and immune context, can be achieved through the inclusion of costimulatory signals such as 4-1BBL or cytokines (IL-7 and IL-21), pseudouridine modification of the mRNA, or LNP design choices such as mannosylated lipids to target conventional type I dendritic cells (cDC1s) or ionizable lipids to promote Toll-like receptor 4 (TLR4) signalling.
Figure 4 · PDF 第 11 页
Fig. 4 | Perioperative prime–boost mRNA vaccine model. A hypothetical example of a heterologous messenger RNA (mRNA) cancer vaccination strategy involving the neoadjuvant administration of a universal mRNA cancer vaccine followed by surgical resection of the tumour and adjuvant administration of an mRNA vaccine encoding a personalized neoantigen. Following surgical resection, the tumour could be immunophenotyped to guide design of the secondary, personalized neoantigen vaccine. For example, for immunologically ‘cold’ tumours, vaccine inclusion of mRNA encoding the cytokine IL-12 together with self-amplifying mRNA encoding the neoantigen could be used to increase costimulation and antigen persistence, respectively, and enhance antitumour immunity. By contrast, immunologically ‘hot’ tumours with chronic inflammatory signalling could benefit from lipid nanoparticle (LNP) modifications that reduce pattern recognition receptor signalling, such as a high concentration of polyethylene glycol-modified (PEGylated) lipids.
完整阅读记录与证据表
文献卡:Programming the immunological properties of mRNA vaccines for cancer
- Paper ID:p-0021-rev-programming-immunological-properties
- 作者:Annette Wu;Seong Dong Jeong;Benjamin R. Schrank;Betty Y. S. Kim;Padmanee Sharma;Wen Jiang
- 期刊/类型:Nature Reviews Immunology,2026,Perspective;本地分类review。
- DOI:10.1038/s41577-026-01316-z;期刊在线日期2026-06-19。
- 接收/分析日期:2026-09-24;晨会日期:2026-09-28。
- Skill:review-read、morning-report、pdf、web-publish。
- 读取范围:来稿14页全部正文、图表、图注、参考文献和声明;4主图1表完整归档。实际覆盖及引文疑点见coverage.md。
- 人工核对状态:待核对(pending)。
- 原文:https://www.nature.com/articles/s41577-026-01316-z
一句话结论
作者将mRNA癌症疫苗整合为四条免疫调节轴和四类可调信号,提出RNA、载体、递送与治疗时序需结合肿瘤免疫背景设计;框架的统一量化尺度及完整围手术期模型仍待验证。
研究问题与背景
mRNA兼具抗原编码与免疫刺激作用,脂质载体也参与组织分布、细胞摄取和先天感知。表达、呈递、炎症和记忆之间相互影响,单一表达量或短期T细胞数量不足以描述全部免疫状态。本文希望把制剂设计变量与可测量的免疫反应联系起来(第1–3、10–12页)。
贡献与比较对象
贡献是组织已有证据的观点框架,分为先天感知、抗原呈递、适应性记忆、训练免疫四轴,并以抗原、共刺激、细胞因子、训练免疫状态四类信号组织设计参数。四信号影响多个轴,作者未给出一一映射或独立可分离的效应估计。原文图3与图4均为概念图,未新增人体或动物实验数据。
范围与选文方法
以非复制型mRNA脂质制剂为主体,纳入未修饰RNA-LPX、自扩增RNA、肿瘤及感染性疾病疫苗的相关研究,涉及基础机制、临床前和临床证据。全文未报告数据库、检索式、检索截止日期、系统纳排标准或证据质量评分;按叙述性Perspective处理。126条参考文献含综述和预印本,未逐一全文核查。
分类体系与代表工作
| 主张或结果 | 条件、比较与证据层级 | PDF页序/图表 | 依据类型 | 核对状态 |
|---|---|---|---|---|
| RNA与载体共同参与感知、呈递及代谢改变 | RNA感知、LNP制剂特征和细胞环境相互作用;通路依制剂变化 | 2–6页,图1 | 正文/示意图;底层机制为转述 | 原文已核;底层实验未全读 |
| 先天感知存在适宜激活区间 | 早期局部作用与持续/全身刺激的影响不同;未给通用数值阈值 | 3–6、10页,图3 | 正文/概念图;转述 | 已核 |
| 呈递细胞与共刺激影响启动质量 | 专业APC/cDC1、淋巴与肿瘤递送;耐受是情境相关风险,原文未称临床常见 | 6–7页,图2、表1 | 正文/转述 | 已核 |
| 适应性记忆涉及持续性和功能 | 耗竭讨论借鉴慢性感染/肿瘤模型;未确立重复癌症mRNA接种导致耗竭 | 7–8页 | 正文/转述 | 已核 |
| 训练免疫涉及代谢及表观遗传改变 | 人体癌症疫苗对肿瘤内训练状态的持久影响仍不清楚;感染性疾病证据单列 | 8–9页,图2 | 正文/转述 | 原文已核;参考99摘要及相关段落已定点核查 |
| 四信号组织设计变量 | 抗原、共刺激、细胞因子、训练免疫状态;相互耦合 | 9–12页,表1 | 作者观点 | 已核 |
| KEYNOTE-942随机Ⅱb期 | 107对50例;复发/死亡HR 0.561。按单侧α=.10设计,ASCO2023摘要单侧P=.0266达到预设标准;2024报告95% CI .309–1.017、双侧P=.053 | 12页,参考9;ASCO2023 LBA9503;作者设计幻灯合集PDF72 | 转述+原始摘要、设计页定点核查 | 单侧预设标准与2024双侧统计值分别记录;完整方案及长期结局未全核 |
| 胰腺癌疫苗的T细胞反应及持久性 | 16名接种者中8名所定义T细胞反应者;Rojas 2023与Sethna 2025是同一Ⅰ期队列,包含其他治疗;反应者分组非随机 | 4、7、10页,参考11–12 | 转述+原始摘要定点核查 | 同队列未累加样本;延长中位随访3.2年,克隆寿命估计与实际随访分开 |
| Lipo-MERIT | Ⅰ期探索性中期分析;RNA-LPX单用或与PD-1阻断联合,CD4/CD8反应和临床活性线索 | 12页,参考10 | 转述+原始摘要定点核查 | 已核设计层级,未全文及附件核查 |
| CARVac辅助CAR T扩增 | 原始参考125描述CLDN6编码尿苷mRNA-LPX;Ⅰ期探索 | 12页,参考125 | 转述+原始摘要/平台段落定点核查 | 采用原始研究平台描述,未沿用综述的self-amplifying mRNA措辞 |
| 围手术期共享抗原初免+个体化加强 | 包括冷热肿瘤分层设想;图中时间轴0–56天为示意,无临床效应量 | 11页,图4 | 作者假设模型 | 已核图注hypothetical及全部图面 |
局限与待解问题
作者明确指出
- 不同肿瘤、患者免疫背景及制剂需要不同的激活窗口;须以前瞻药效学读数与临床试验继续检验(第10–12页)。
- 人体肿瘤内持久训练免疫的建立、细胞来源及对后续刺激的影响尚不清楚(第9页)。
- 免疫耐受及疫苗重复接种相关耗竭在临床癌症疫苗中的证据有限,需区分机制风险与已观察结果(第6–7页)。
- 调节性B细胞及抗载体反应等作用依情境而变(第8页)。
AI分析与理由
- 叙述性选文混合物种、平台、给药场景和证据阶段,四轴本身尚未构成经临床验证的评分系统。表1预期作用不作为每行已有临床证实的结局。
- 图3中甘露糖靶向、GC含量等标签是制剂情境中的概括;第4页讨论GC优化支持表达,不能仅从图3建立“高GC必然过炎症”的独立因果规则。本篇采用一般性的组合参数说明。
- 围手术期时序是作者示例,本篇不据图中日期生成用药/接种建议。
- 图2、参考9/99/125相关衔接问题逐条记录于coverage.md。原图不更改,必要差异就近简短说明,其余集中于局限。
- 原文第14页披露Padmanee Sharma的咨询与股权利益,其他作者声明无竞争利益。披露本身未作为判断结论真假的依据。
优先追读清单
以下7篇均尚未完成全文及附件核查。前6篇已作特定问题的摘要/段落核查;“定点核查”不计为独立全文精读。
| 优先级 | 原始研究 | DOI | 本次范围及后续问题 |
|---|---|---|---|
| 1 | Weber等,KEYNOTE-942,Lancet 2024 | 10.1016/S0140-6736(23)02268-7 | 正式报告摘要、会议摘要及作者设计页;完整统计方案与长期终点尚未完整核查 |
| 2 | Rojas等,胰腺癌个体化RNA疫苗,Nature 2023 | 10.1038/s41586-023-06063-y | 摘要/试验背景;免疫反应判定及混杂尚未完整核查 |
| 3 | Sethna等,胰腺癌长期CD8记忆,Nature 2025 | 10.1038/s41586-024-08508-4 | 摘要;克隆追踪、模型寿命与功能实验尚未完整核查 |
| 4 | Sahin等,Lipo-MERIT,Nature 2020 | 10.1038/s41586-020-2537-9 | 摘要;队列选择与比较条件尚未完整核查 |
| 5 | Simonis等,疫苗后巨噬细胞表观遗传记忆,Molecular Systems Biology 2025 | 10.1038/s44320-025-00093-6 | 摘要、采样/图1说明及讨论段;全组学和其他图表尚未完整核查 |
| 6 | Mackensen等,BNT211-01,Nature Medicine 2023 | 10.1038/s41591-023-02612-0 | 摘要、CARVac平台段;不同队列与附录尚未完整核查 |
| 7 | McCarron等,多表位RNA疫苗免疫优势性,bioRxiv预印本 | 10.1101/2025.10.26.684631 | 仅综述参考79,原始全文尚未核查;追踪正式发表 |
本次定点核查来源链接及判断见sources/spot-checks.md。