研究问题
T细胞识别抗原时,机体的营养状态会影响这次应答的后续过程吗?本文关注隔夜空腹与短时进食后的差别,依次考察采血时的代谢表型、激活和扩增后的持续性、营养物质来源,以及细胞治疗中的功能结果。
研究的核心变量是TCR激活前后所处的脂质环境。人样本提供配对观察,小鼠同宿主共转移、血清转移和受体缺失实验进一步检验其作用环节。
研究设计
| 层次 | 对象与比较 | 主要读出 |
|---|---|---|
| 人样本 | 健康供者隔夜空腹与恢复正常进食约6小时后的配对采血;补表S1列31条供者记录 | CD3⁺ T细胞呼吸,CD8⁺ T细胞代谢染色、细胞因子,以及体外扩增7天后的表现 |
| 体内应答 | 空腹或自由进食小鼠的初始OT-I CD8⁺ T细胞按1∶1转入同一宿主 | 抗原刺激后的竞争扩增、记忆细胞数量与再应答 |
| 机制 | 血清及乳糜微粒转移、WT/Ldlr缺失混合骨髓嵌合、翻译与mTOR相关检测 | 脂质利用、氧耗、蛋白合成及效应功能 |
| 治疗模型 | Pmel-1 T细胞治疗B16-F10;健康供者来源CD19 CAR-T治疗NSG小鼠的NALM6白血病 | 肿瘤负荷、生存、T细胞持续存在和细胞因子产生 |
餐后表型可延续至体外扩增之后
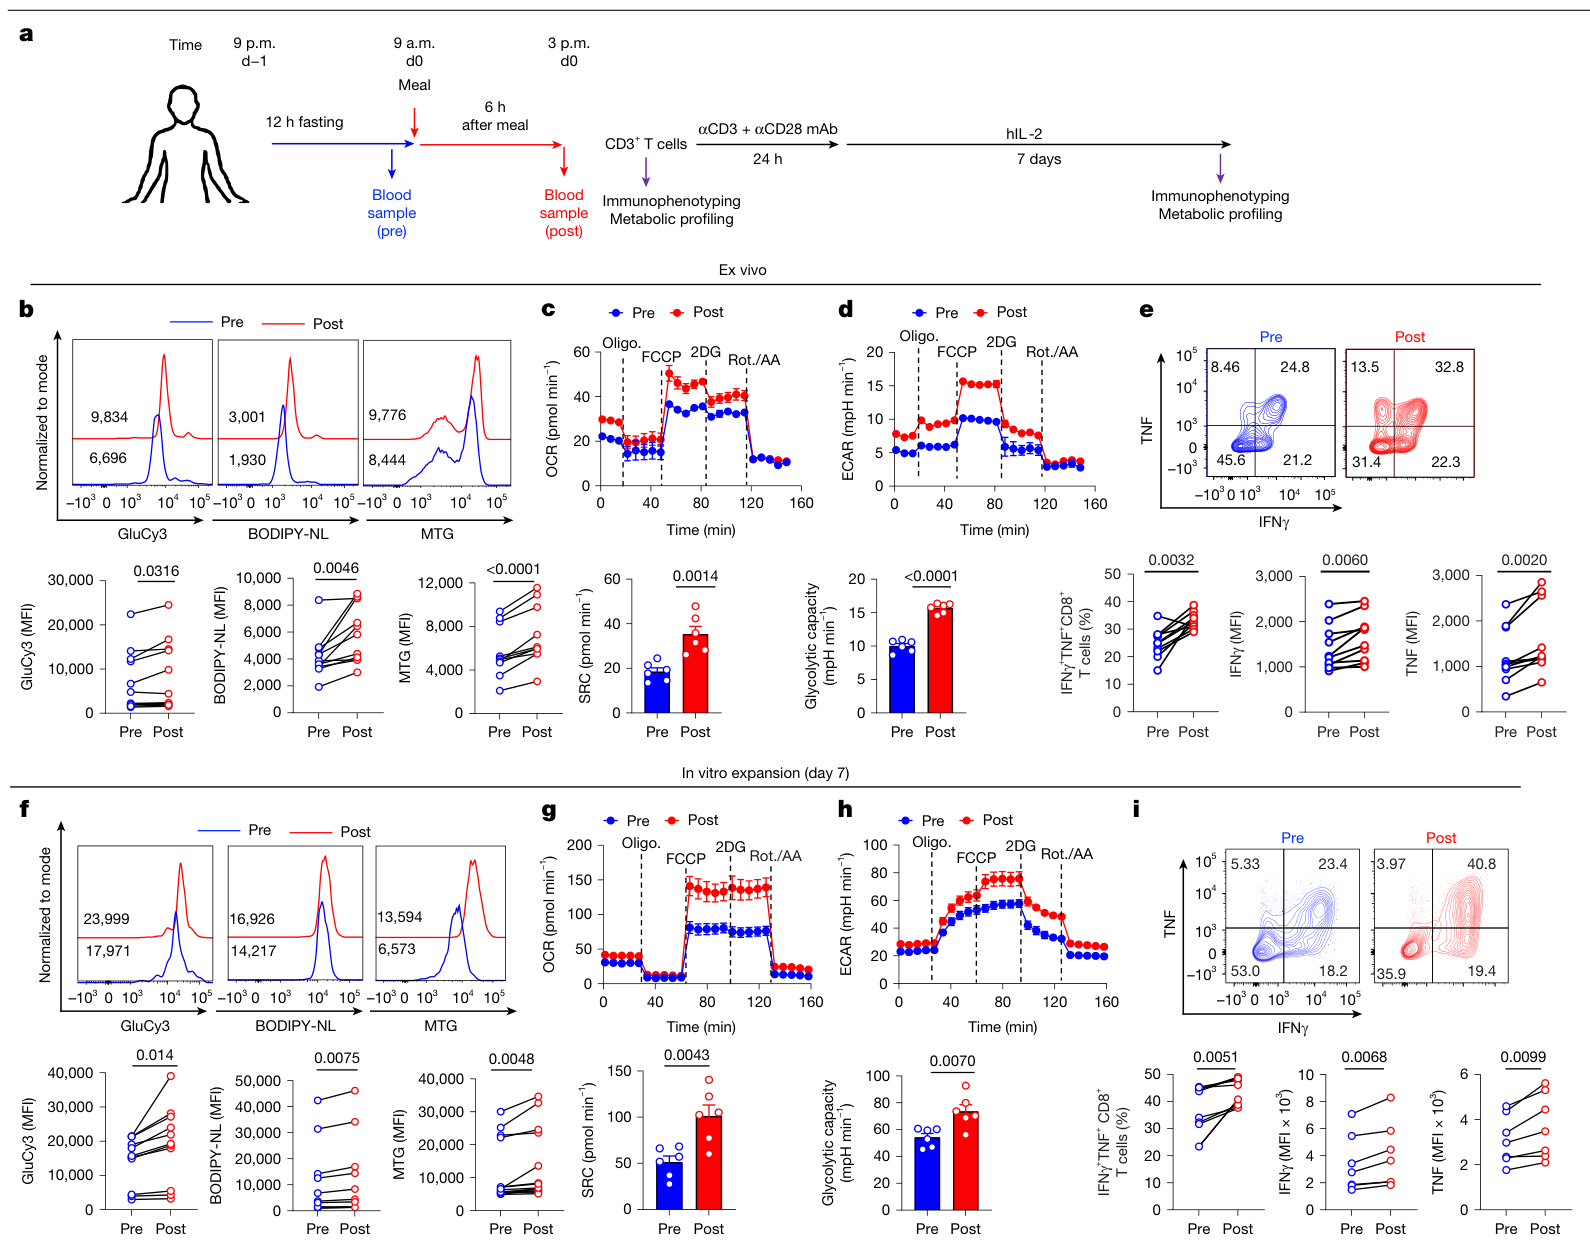
在配对人样本中,餐后CD8⁺ T细胞的葡萄糖摄取、脂质含量和线粒体质量染色提高;分离的CD3⁺ T细胞具有较高的备用呼吸能力和糖酵解能力。CD8⁺ T细胞经刺激后的IFNγ、TNF产生也增加。这些差别在激活并扩增7天后仍可检测到。(图1,PDF第2页)
图1的代谢染色和细胞因子主要比较为10名供者的配对数据;呼吸曲线的n=6指检测孔数。扩展图1c–f进一步呈现31份供者样本。持续空腹或持续进食的两次采血对照未观察到同样的代谢改变,为单纯采血时间差提供了对照。(扩展图1,PDF第16–17页;补表S2)
激活时点影响扩增,记忆池数量与单细胞再应答需要分别观察
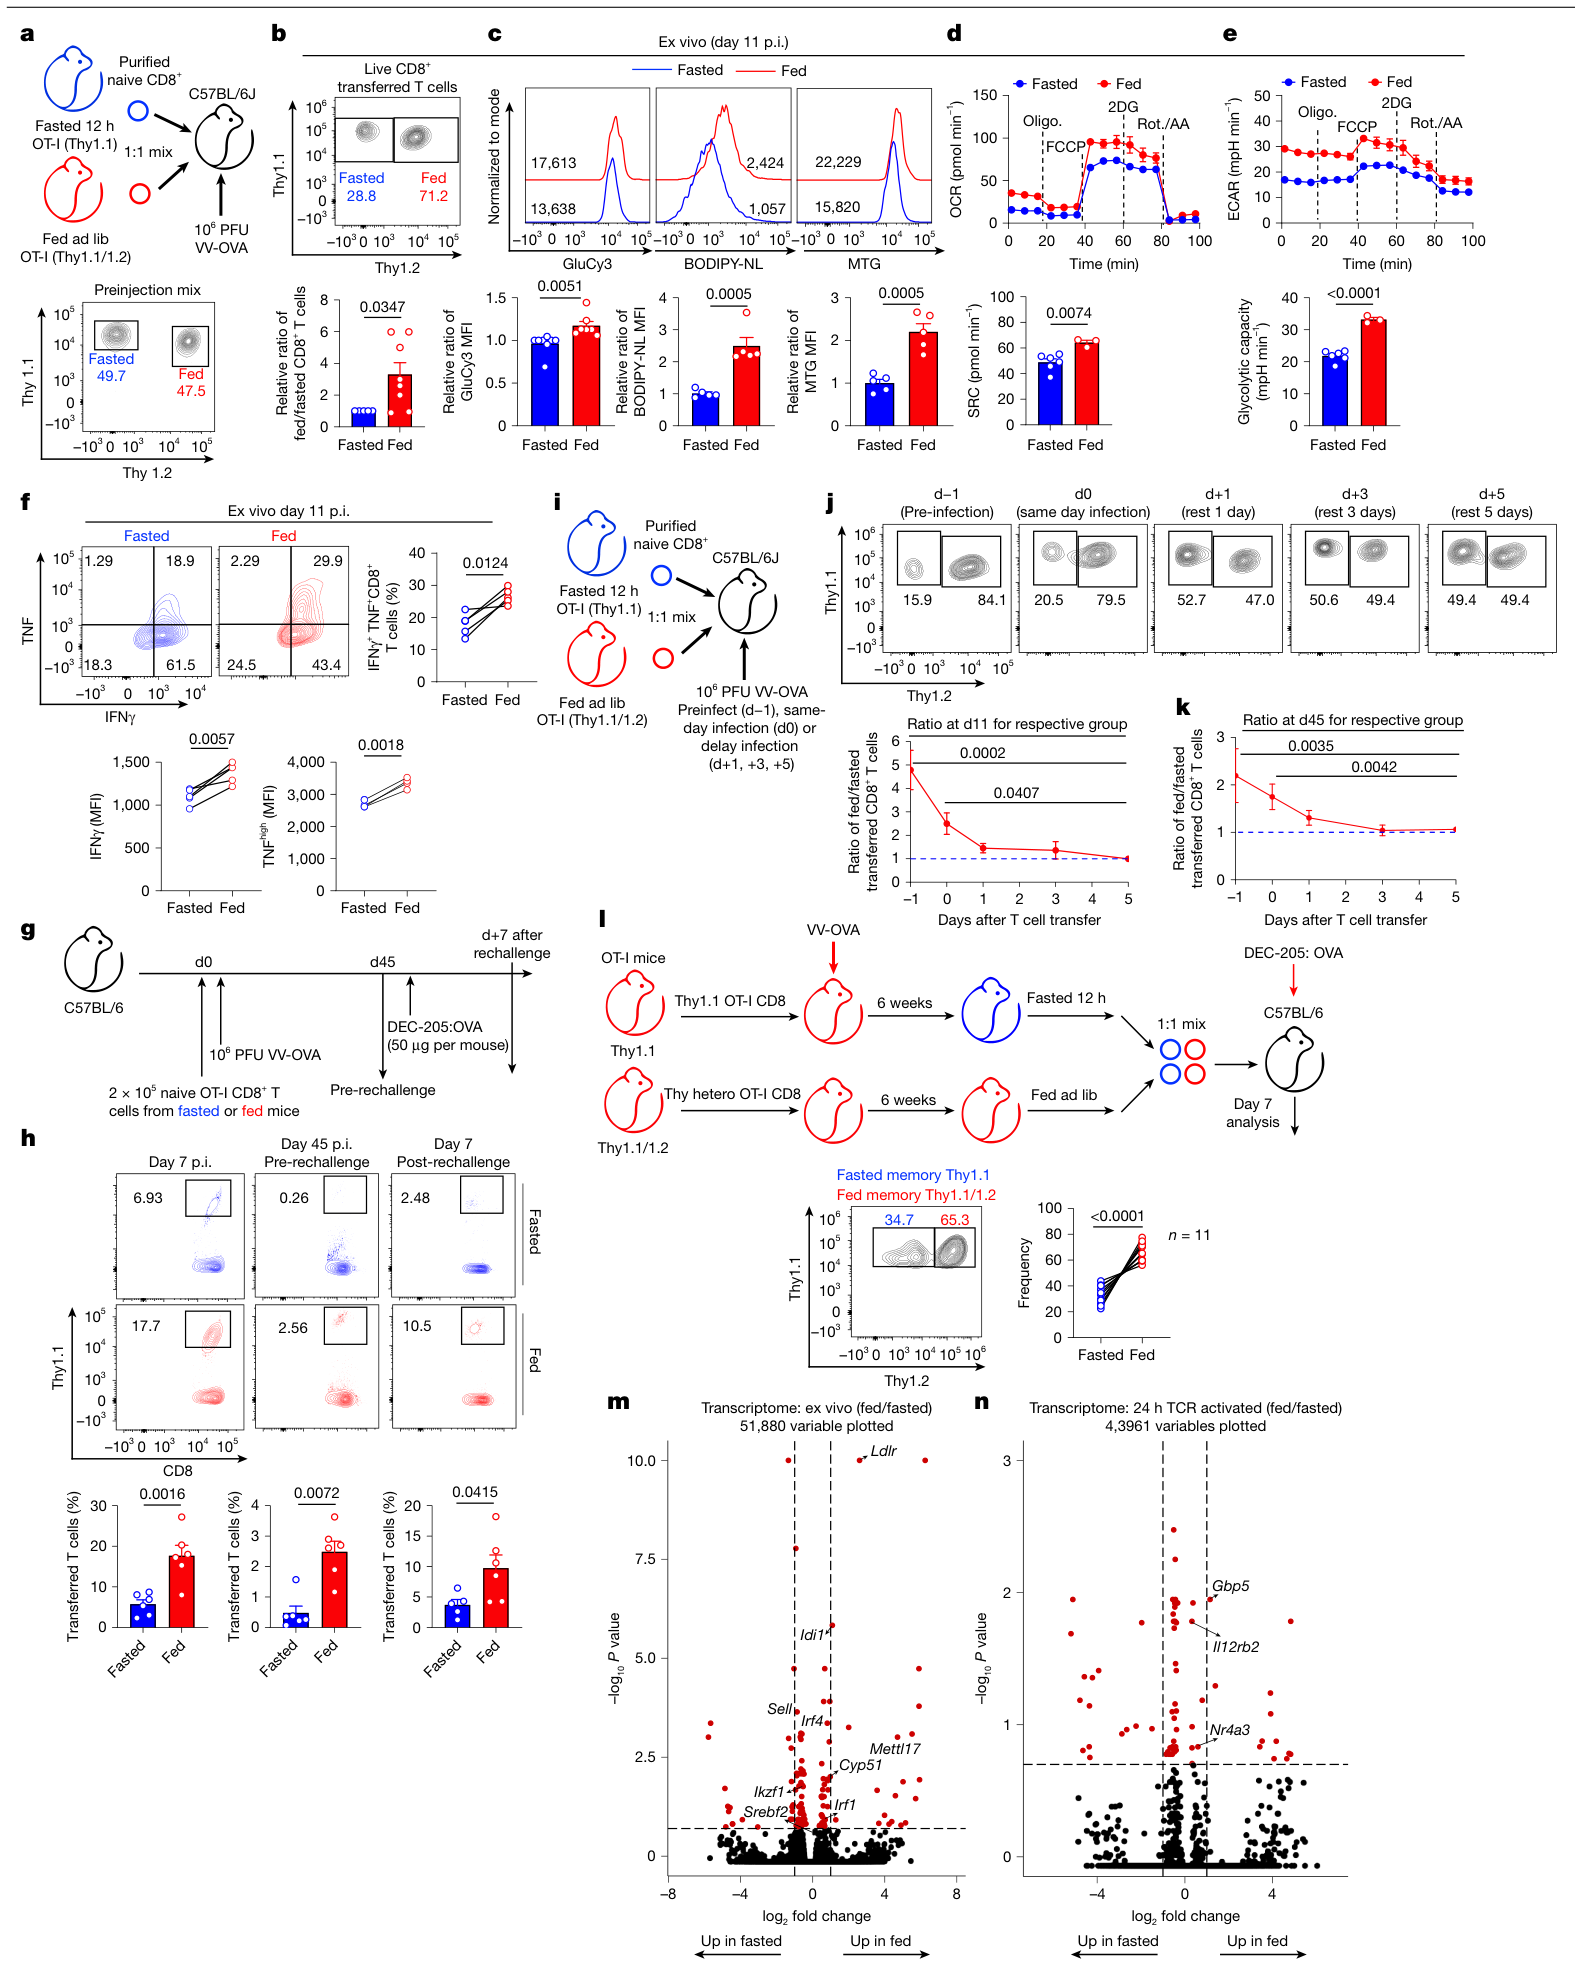
作者把空腹和进食状态下获得的初始OT-I T细胞共转入同一只小鼠。抗原刺激后,进食来源细胞在第11天占比更高,并表现出更好的代谢和细胞因子读出。交换同系标记后结果方向一致,减少了宿主环境和标记本身的干扰。(图2a–f;扩展图4a)
这一优势依赖相近的激活时点:在转移前或同日给予抗原刺激时较明显,将刺激延后1、3、5天后逐渐减弱。单纯淋巴细胞减少驱动的增殖未出现相同优势。(图2i–k;扩展图4h)
进食来源细胞形成了较大的记忆池,数量差异在第45天及40周时仍可观察到。另一方面,作者在第45天把两组记忆细胞重新分选、调为相同数量并转入新宿主,再次刺激后的扩增相近。由此,初次应答带来的记忆细胞数量优势与等量记忆细胞的再扩增能力有各自的证据。(扩展图4d–g,PDF第20–21页)
作者还在已形成记忆的小鼠中重新比较当下的空腹/进食状态,进食状态下采出的记忆细胞再次扩增更强。这项实验检验的是再应答附近的营养状态。(图2l)
乳糜微粒与LDLR参与传递餐后效应
餐后血清可以把代谢优势传递给空腹来源的T细胞。进一步分离和去除脂蛋白成分后,证据指向富含甘油三酯的乳糜微粒:去除其浮层会减弱餐后血清的效应;补充野生型来源乳糜微粒则能增强细胞代谢及后续体内应答。来自hApoCIII转基因小鼠、脂质利用效率较低的乳糜微粒作用较弱。纯化人LDL在相应实验条件下未复制这一代谢优势。(图3b–e、j–q;扩展图5o)
单营养素实验中,作者报告脂质来源的灌胃处理在6小时后产生较强的呼吸改善;该子图的营养素名称按期刊正式勘误解释。(图3h;PDF第5页结果段)
混合骨髓嵌合实验让WT与Ldlr缺失T细胞处于同一宿主内,降低了整只Ldlr缺失动物高脂血症的干扰。Ldlr缺失细胞的餐后呼吸和效应功能优势大幅减弱,但葡萄糖摄取仍可升高,说明LDLR承担的是其中一部分关键代谢环节。(扩展图6,PDF第24页)
蛋白翻译连接短时营养状态与后续功能
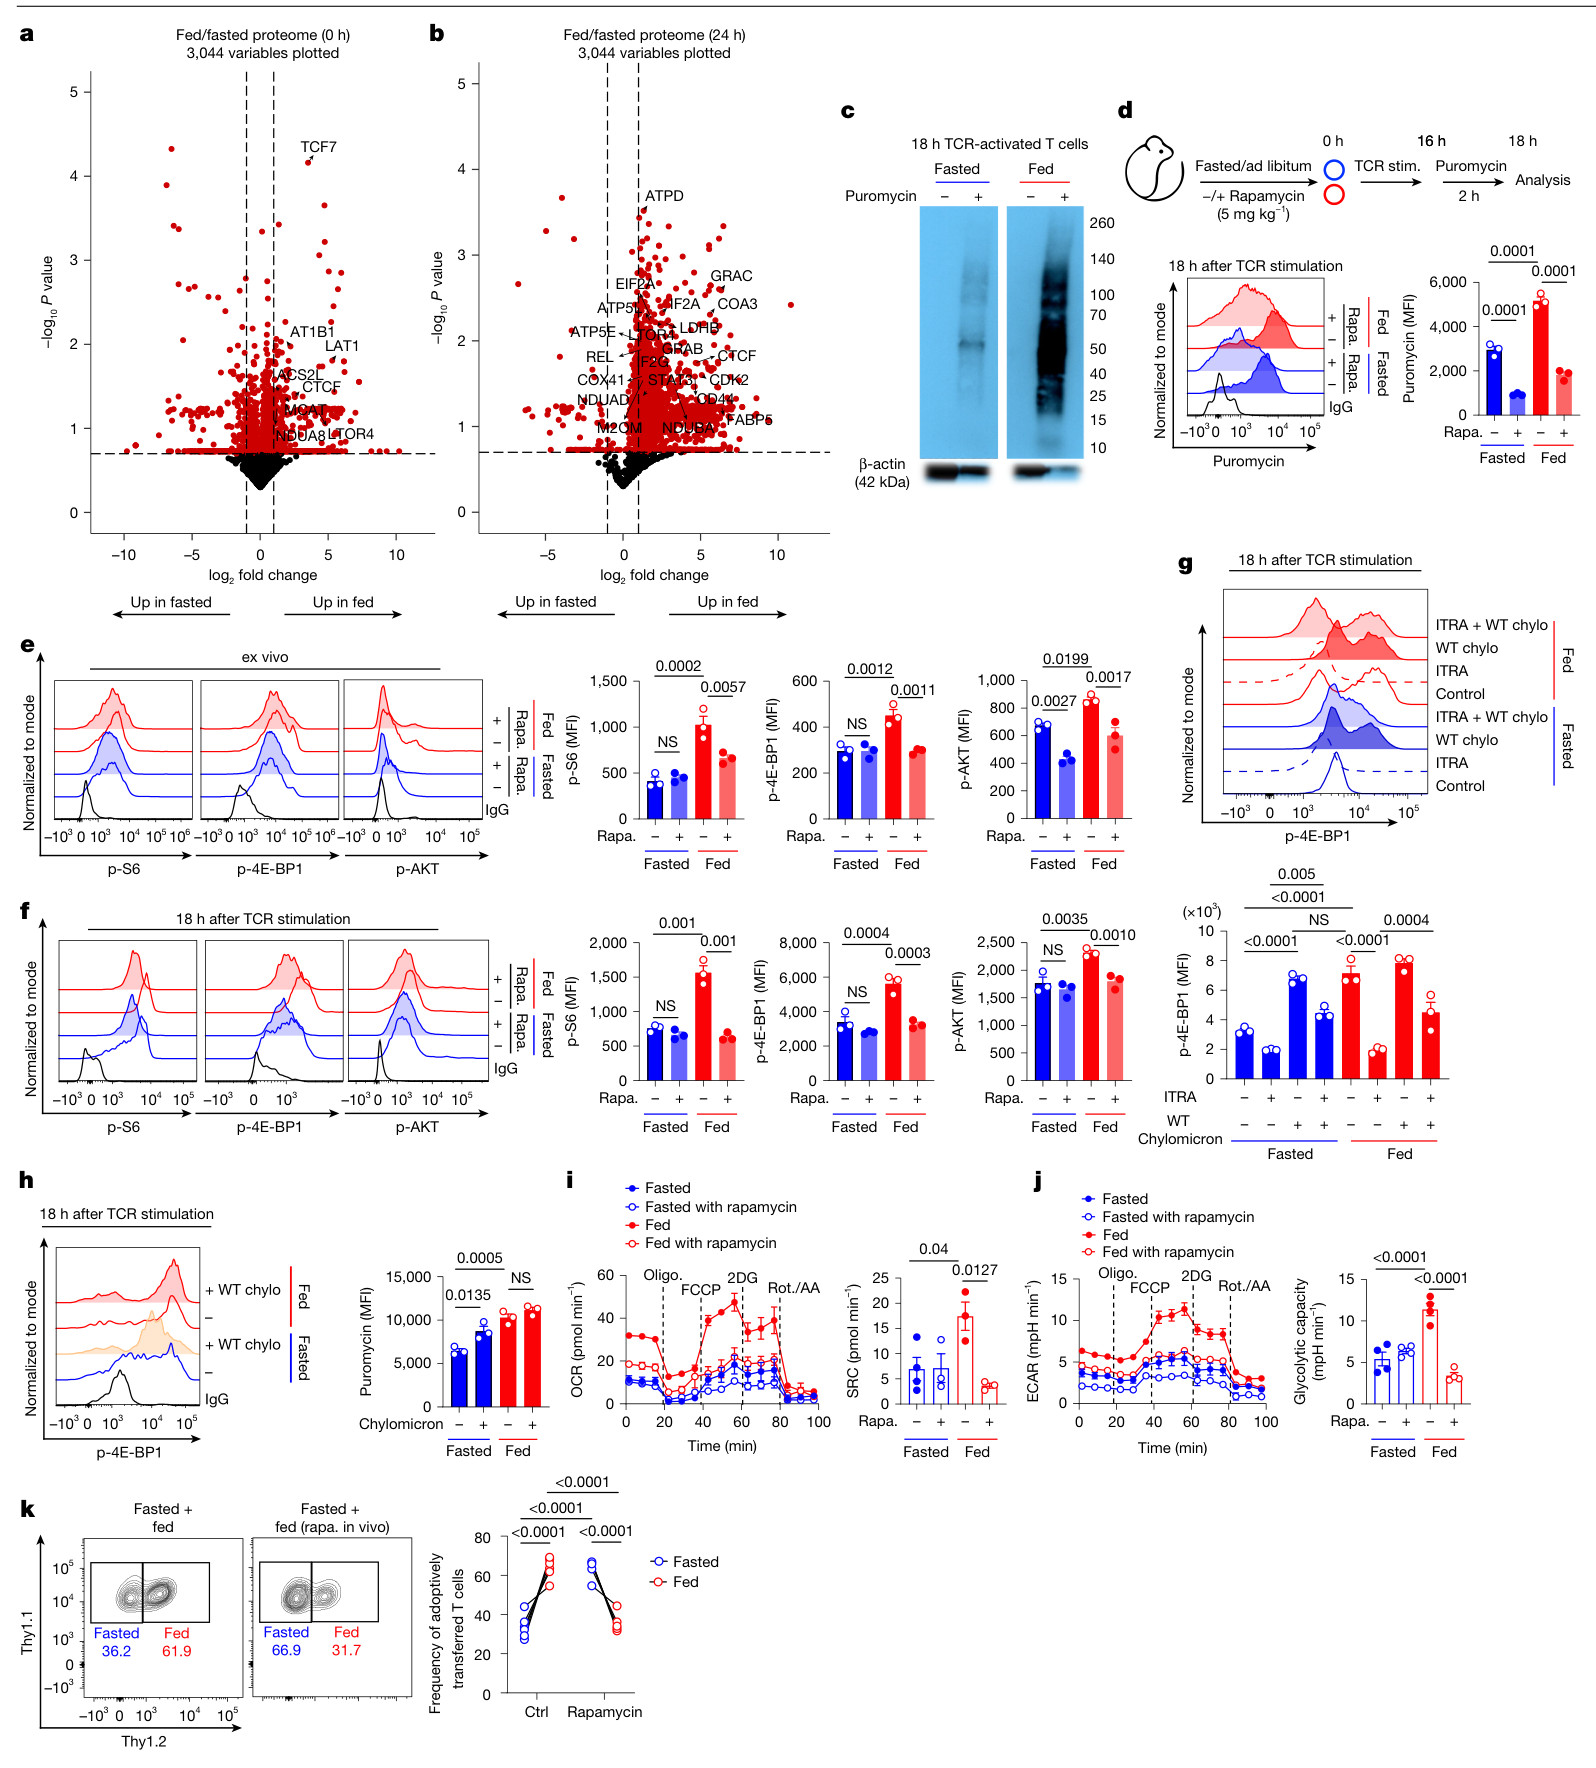
RNA-seq与ATAC-seq在早期未显示与显著表型变化相匹配的大规模转录或染色质可及性重塑。蛋白质组则观察到较多差异,涉及翻译、代谢及激活相关蛋白;嘌呤霉素掺入实验也显示餐后来源细胞的蛋白合成增加。(图2m、n;图4a–c;扩展图4k、7)
餐后细胞的p-S6、p-4E-BP1和p-AKT信号增强,进食期间给予雷帕霉素会削弱蛋白合成、代谢优势和后续竞争扩增。乳糜微粒补充与胆固醇运输干预进一步支持营养供给、mTOR信号及翻译之间的联系。(图4d–k,PDF第7–8页)
因此,本文提出的机制是:餐后循环脂质提高T细胞的底物储备与营养感知,促进激活初期的翻译和代谢适应,进而影响扩增和效应分化。分裂后的子代仍保留较高的代谢染色与细胞因子读出,为这种持续性提供了细胞层面的观察。(扩展图8)
细胞治疗中的验证来自小鼠模型
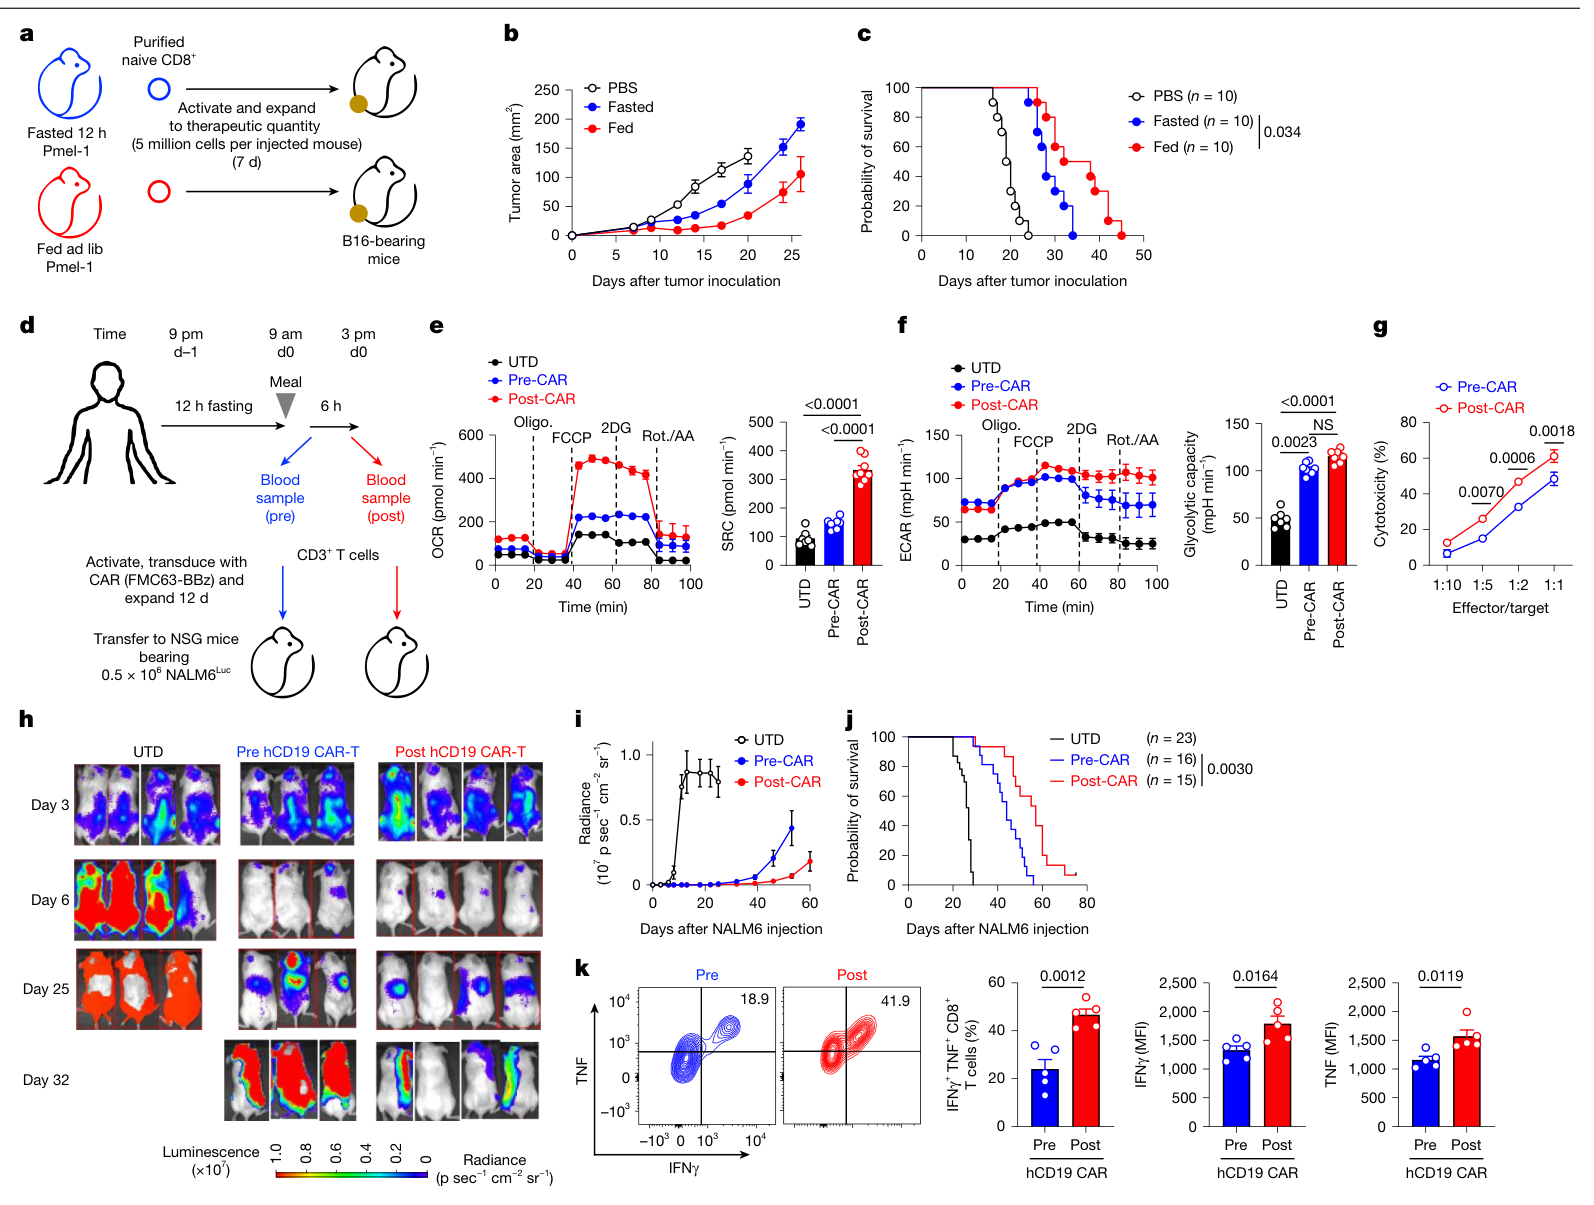
进食来源的Pmel-1 T细胞在体外扩增后,用于B16-F10黑色素瘤小鼠的过继治疗,肿瘤控制和生存优于空腹来源细胞;图5b、c每组10只小鼠,来自两次独立实验。(PDF第9页)
人源实验使用同一健康供者餐前、餐后采集的CD3⁺ T细胞制备CD19 CAR-T。餐后来源CAR-T具有较高呼吸能力,并对工程化表达CD19的A549靶细胞表现出较强体外杀伤。随后在NALM6白血病NSG小鼠中,两组CAR-T均有早期疗效,餐后组后续复发较少、生存较长。(图5d–j)
生存比较的23只未转导T细胞对照、16只餐前CAR-T及15只餐后CAR-T小鼠来自3名供者的实验;这些数字是受体小鼠数。结果提示采集时的营养状态值得作为细胞制备变量继续研究。(图5及扩展图9)
局限与待解问题
- 人研究未统一饮食组成和摄入量;补表S1记录的实际空腹时长为9–15小时。当前证据适用于这组短时营养状态比较,最佳餐食、脂质种类和时间窗仍待确定。
- 人呼吸实验包含技术孔重复;CAR-T体内实验的供者层级重复为3名。后续需要在供者层面评估稳定性,并在患者来源细胞中验证。
- LDLR遗传实验与乳糜微粒转移支持脂质作用,雷帕霉素和伊曲康唑等药理干预仍存在作用范围与特异性限制。脂质燃料和营养信号的相对贡献尚未完全分离。
- 早期翻译改变如何在多轮分裂中延续,以及哪些蛋白对持久性最关键,仍缺少更直接的因果拆分。早期ATAC结果也为其与经典表观遗传记忆的关系留下问题。
- 治疗终点来自黑色素瘤及白血病小鼠模型;人体抗肿瘤疗效、长期饮食干预和采集流程优化仍需专门研究。
新线索
本文把营养状态落实到一个可检验的时间问题:激活初期的脂质供给如何设定后续应答规模。值得追踪的是供给、翻译启动和细胞分裂之间的时序,以及能否在标准化制备条件下获得跨供者的稳定效果。
相关原始研究:The low-density lipoprotein receptor–mTORC1 axis coordinates CD8⁺ T cell activation,JCB,2022。该文承接LDLR与营养感知问题;本次核实题名及摘要,未独立全文精读。
主图与表格 · 4 张
图1:人餐前餐后T细胞的代谢与功能 · PDF 第 2 页
Fig. 1 | Postprandial metabolism provides human T cells with improved metabolic and functional fitness that persists after in vitro expansion. a, Scheme of fasting and postprandial blood draws from human participants. b, Glucose uptake (left), neutral lipid content (middle; measured by BODIPY-NL (493/503)) and mitochondrial mass (indicated by MitoTracker Green (MTG), right) of CD8+ T cells from human peripheral blood mononuclear cells (PBMCs) ex vivo. GluCy3, 1-amino-Cy3-glucose; hIL-2, human IL-2; MFI, mean fluorescence intensity. c, OCR traces of a mitochondrial stress test of magnetically purified CD3+ T cells from human PBMCs collected in preprandial (fasted) or postprandial (fed) state (top); and tabulation of SRC (bottom). 2DG, 2-deoxy-d-glucose; AA, antimycin a; FCCP, carbonyl cyanide p-trifluoromethoxyphenylhydrazone; rot., rotenone. d, Extracellular acidification rate (ECAR) of ex vivo CD3+ T cells as in c. Glycolytic capacity was calculated for ex vivo preprandial and postprandial T cells (lower panel). e, Cytokine production of CD8+ T cells stimulated with PMA and ionomycin for 6 h in the presence of a protein transport inhibitor. Representative fluorescence-activated cell sorting (FACS) plot (upper panel) and bar graphs of IFNγ+TNF+ CD8+ T cell frequencies (lower panel, left) and geometric MFI (lower panel, right). f–i, As in b–e, except that T cells from a were activated overnight with anti-CD3 + anti-CD28 mAbs and expanded in hIL-2 for 7 days. In b,e,f and i, data are mean ± s.e.m., n = 10 human donors, two-tailed paired Student’s t-test analysis. In c,d,g and h, data are mean ± s.e.m., n = 6 wells; two-tailed unpaired Student’s t-test analysis. *P < 0.05, **P < 0.01, ***P < 0.001, ****P < 0.0001. Data are representative of 31 human donor samples. Human cartoon in panel a adapted from ref. 48, Springer Nature America.
图2:激活时点与持久应答 · PDF 第 4 页
Fig. 2 | Postprandial CD8+ T cells respond more vigorously to infection in vivo. a, Schema: naive CD8+ T cells from Thy1.1 and Thy1.1/1.2 OT-I mice fed ad libitum (ad lib) or fasted 12 h were transferred 1:1 (see preinjection cytogram) to VV-OV-infected mice (106 PFU i.p. (intraperitoneal)). b, Cytogram (upper) and ratios (lower) of transferred splenic CD8+ T cells at day 11 (d11) post-infection (p.i.) (n = 8 mice). c, GluCy3 uptake (left), BODIPY-NL (middle) and MTG (right) of transferred OT-I at d11 p.i. (n = 5 mice). d, OCR (top) and SRC (bottom) of OT-I T cells at d11 p.i. e, ECAR from d. f, Cytokine production in T cells (n = 5 mice). g, Schema: 2 × 10⁵ fasted or fed naive OT-I T cells were separately transferred to VV-OVA-infected mice for 45 d, then rechallenged with DEC-205:OVA (50 μg i.p.). h, Cytogram of T cells from fasted or fed OT-I mice in the blood of recipient mice at d7 p.i. (left), d45 p.i. (middle) and d52 (7 d post-DEC-205:OVA) (n = 6 mice). i, As in a, but mice were preinfected (d−1) or coinfected (d0) or underwent delayed infection (d+1, d+3, d+5). j, Cytogram (upper) and ratios (lower) of transferred OT-I T cells in blood (n = 6 mice). k, As in j, but at d45 p.i. l, Cytogram of postprandial effects on memory T cells (n = 6 mice). Congenically mismatched OT-I T cells from fed mice were separately transferred to VV-OVA infected mice. At memory stage (d45 p.i.), mice were fasted or fed before isolation and cotransfer of OT-I cells into DEC-205:OVA-immunized mice (n = 11 mice). m,n, Differentially expressed genes in fasted versus fed CD8+ T cells ex vivo (m) and 24 h after in vitro TCR stimulation (n) (n = 3 mice). In b,c,f,h and j–n, data are mean ± s.e.m., n = 5 to n = 11 mice. In d and e, n = 6 wells for fasted and n = 3 wells for fed. Two-tailed unpaired (b–e,h,m and n) or two-tailed paired (f and l) Student’s t-test analysis. For j and k, one-way analysis of variance (ANOVA) (statistics with respect to d+5). Data represent three independent experiments. Mouse cartoons in panels a, g, i and l adapted from ref. 48, Springer Nature America.
图4:mTOR依赖的蛋白翻译 · PDF 第 8 页
Fig. 4 | Postprandial metabolic changes induce mTOR-dependent translation of key immune and metabolic genes. a,b, Volcano plot of proteomes from ex vivo (a) and 24 h TCR-activated (b) CD8+ T cells from fasted and fed mice (n = 3 per group). c, Immunoblot of puromycin and actin in 18 h TCR-stimulated CD8+ T cells from fasted and fed mice. Cells were treated with puromycin (10 μg ml−1) for 2 h before collection. d, Flow cytogram of puromycin staining in mice that had been fasted or fed. Some mice received an i.p. injection of rapamycin (rapa.; 5 mg kg−1) during the fast/feed period. Stim., stimulation. e, p-S6, p-4E-BP1 and p-AKT staining in ex vivo CD8+ T cells from fasted and fed mice as in d. f, As in e, but after 18 h of TCR + CD28 activation. g, p-4E-BP1 in naive CD8+ T cells activated for 18 h plus chylomicrons in the presence of cholesterol uptake inhibitor itraconazole (ITRA; 2 μM). h, Puromycin staining of fasted or fed T cells treated with chylomicrons during activation. i,j, OCR (i) and ECAR (j) traces of ex vivo CD8+ T cells from fasted and fed mice that were treated with or without rapamycin in vivo during the fast/feed period (n = 3 to n = 4 wells). k, Relative expansion of OT-I CD8+ T cells at day 11 p.i. with VV-OVA (n = 5) as in Fig. 2a, but with some donor OT-I mice having received rapamycin during the feeding period. In d–h, data are mean ± s.e.m., n = 3 mice per group, one-way ANOVA. In i–k, data are mean ± s.e.m., one-way ANOVA. *P < 0.05, **P < 0.01, ***P < 0.001, ****P < 0.0001. Data in c–k are representative of three independent experiments. Mouse cartoon in panel d adapted from ref. 48, Springer Nature America.
图5:过继T细胞与CAR-T小鼠实验 · PDF 第 9 页
Fig. 5 | Postprandial metabolism provides therapeutic T cells with enhanced anti-tumour immunity. a, Scheme showing adoptive transfer of in vitro expanded TCR-Tg Pmel-1 CD8+ T cells (initially isolated from fasted or fed mice) in B16-F10-bearing mice. b, Tumour growth curve (area) of B16-F10-bearing mice. PBS, phosphate-buffered saline. c, Survival curve of mice as in b (n = 10 mice per group; pooled from two independent experiments). d, Experimental scheme for human CAR-T studies. e, OCR trace of human CAR-T cells generated from preprandial or postprandial samples, measured on d12 of their in vitro expansion. SRC was compared among groups. f, ECAR and glycolytic capacity of CAR-T cells. g, Killing assay for d12 expanded human CAR-T cells using A549 hCD19 adherent cells as targets. h, Representative luminescence images of NALM6Luc-engrafted mice that received transfer of human CAR-T cells on d4. Untransduced (UTD, left), pre-CAR (middle) and post-CAR (right) on day 3, day 6, day 25 and day 32. i, NALM6Luc luminescence in mice over time as in h. j, Survival curve for i (n = 23 mice for UTD; n = 16 mice for pre-CAR; and n = 15 mice for post-CAR group). k, Cytogram of cytokine production in preprandial and postprandial CAR-T cells from separate cohorts of NALM6-engrafted NSG mice at day 7 posttransfer (n = 5 mice per group). Splenocytes were cocultured with NALM6Luc cells overnight in the presence of a protein transport inhibitor. For g–k, experiments were performed with three different human donors. In e–g, data are mean ± s.e.m., n = 8 (e and f) or n = 3 (g) wells, one-way ANOVA. In k, data are mean ± s.e.m., n = 5 recipient mice per group, two-tailed unpaired Student’s t-test analysis. Statistical analysis used two-way ANOVA with Tukey’s multiple comparisons (b and i) or log-rank Mantel–Cox test (c and j). Mouse and human cartoons in panels a and d adapted from ref. 48, Springer Nature America.
完整阅读记录与证据表
文献卡:Postprandial lipid metabolism durably enhances T cell immunity
- Paper ID:p-0040-art-postprandial-lipid-metabolism-durably
- 分析日期:2026-11-03;Skill:article-read、morning-report、pdf、spreadsheets、web-publish。
- 晨会日期:2026-11-02;接收、首次阅读日期:2026-11-03。
- 来源:桌面112晨会.pdf,31页;Nature 654, 1065–1075 (2026),在线2026-04-29。
- DOI:10.1038/s41586-026-10432-8;人工核对:pending。
- 实际覆盖、原文出入与未完成事项:coverage.md。完整图集:figures/README.md。
一句话结论
人配对样本及小鼠实验支持,T细胞激活附近的餐后脂质环境可改变代谢、翻译和后续应答规模;抗肿瘤治疗结果来自小鼠过继治疗及人源CAR-T异种移植模型。
研究问题与背景
研究从短时全身营养状态切入,询问T细胞在激活前取得的脂质能否影响后续分裂、效应与记忆形成。比较对象为同供者餐前/餐后样本或空腹/自由进食小鼠,不涉及长期高脂饮食试验。背景研究的LDLR–mTORC1机制仅作为外部线索,本次未把其列为独立全文精读。
贡献与比较对象
- 人配对样本与培养扩增把即时状态和后续表型联系起来。
- 同宿主、同抗原、同系标记交换设计减少受体环境差异;激活时间延迟和等量记忆细胞再转移提供边界。
- 血清/乳糜微粒转移、LDLR混合嵌合及mTOR相关实验串联营养来源与细胞内反应。
- 两类过继治疗提供功能验证;CD19 CAR-T的人体材料来自健康供者,疗效终点在小鼠。
方法与验证
人样本在隔夜空腹及恢复正常进食约6小时后采血,饮食自由选择。呼吸实验常使用富集CD3⁺ T细胞,代谢染色与细胞因子常在CD8⁺门内分析。区分供者配对、混合细胞技术孔、小鼠与实验批次。
小鼠主要比较12小时空腹与自由进食;包括初始OT-I、OT-I×Rag2缺失、同宿主共转移、Ldlr缺失混合骨髓嵌合、早期翻译和代谢检测。治疗包括Pmel-1/B16-F10及3名供者来源的CD19 CAR-T/NALM6-NSG实验。本文分析记录的是已发表设计和证据层级,未重算组学或药物干预的剂量响应。
核心证据
| 主张或结果 | 数字、单位、条件 | PDF页序/图表 | 依据与核对 |
|---|---|---|---|
| 人餐后表型延续至扩增后 | 同供者两次采血,恢复进食约6 h;体外扩增7 d;主图染色/细胞因子n=10名供者配对 | 1–3;图1b、e、f、i;扩展图1c–f | 正文、原图与完整图注;扩展图呈31份样本 |
| 呼吸读出与生物重复有区别 | 图1c、d、g、h n=6检测孔;呼吸细胞为CD3⁺,非全部只测CD8⁺ | 2;图1图注 | 已核图注;未把技术孔视为6名独立供者 |
| 激活后进食来源OT-I占比提高 | 1∶1共转移;第11 d脾脏,图2b n=8只受体小鼠;交换标记保持方向 | 3–5;图2a–f;扩展图4a | 正文、原图/图注;同宿主竞争比较 |
| 记忆池数量优势与等量再应答不同 | 第45 d与40周数量仍较高;分选第45 d记忆细胞并按1∶1等量再转移后,二次扩增相近,n=5受体小鼠 | 20–21;扩展图4d–g | 原图及图注已核;阴性结果保留 |
| 激活窗口与抗原依赖 | 转移前1 d、同日或延后1/3/5 d刺激;延迟削弱优势;Rag2缺失宿主中的稳态扩增无同等优势 | 4–5、20–21;图2i–k、扩展图4h | 正文、原图、图注 |
| 血清与乳糜微粒可转移作用 | 人、鼠餐后血清;去浮层、WT/hApoCIII来源乳糜微粒及纯化LDL对照 | 5–7;图3b–q;扩展图5 | 已核;只按对应读出表述,不把单一营养物等同整餐 |
| LDLR承担部分关键环节 | WT与Ldlr缺失骨髓1∶1嵌合;图6c、e每组5只,呼吸n=3–10技术孔;葡萄糖摄取仍有餐后上升 | 24;扩展图6 | 原图及图注;未写为全部代谢作用均由LDLR解释 |
| 转录/可及性变化较少,蛋白层变化明显 | RNA/ATAC与蛋白组比较;蛋白组每组n=3;嘌呤霉素掺入与mTOR相关磷酸化 | 4、7–8、20–21、25;图2m、n、图4、扩展图4k、7 | 已读正文、原图、补充原始胶片;未推定为确定表观遗传记忆 |
| mTOR相关干预影响表型与扩增 | 进食期间雷帕霉素削弱翻译、代谢和第11 d共转移优势;胆固醇运输药理实验提供辅助支持 | 7–8;图4d–k | 原图与图注;药理关联不扩大为完整受体机制 |
| Pmel-1治疗功能 | B16-F10小鼠;图5b、c各组10只,两次实验;肿瘤面积mm²及生存 | 9;图5a–c | 已视觉核对;未混用Methods另一处通用处理剂量 |
| 人CAR-T体外与体内证据 | 体外靶标为工程化A549-hCD19;体内为NALM6-NSG;UTD 23只、餐前16只、餐后15只,来自3名供者实验 | 7、9、14、27;图5d–k、扩展图9 | 正文、原图、图注;受体小鼠数与供者数分开 |
局限与待解问题
作者明确指出
- 人饮食输入未控制;后续需控制脂质来源和时间过程。(PDF第10页)
- 人鼠脂蛋白代谢动力学有差别,其他活性脂质也可能参与。(第10页)
- 短时窗口下群体迁移、昼夜节律交互及持续性机制仍需进一步研究。(第9–10页)
AI推断与理由
- 呼吸技术孔及CAR-T小鼠共享供者,提示后续应在供者层级检验稳健性;本次未据图重算人群效应量。
- 等量记忆细胞再转移的阴性结果支持分别讨论应答规模和细胞内在再扩增能力。
- 蛋白组、翻译染色和药理干预支持翻译作用,尚未逐一证明关键蛋白如何维持跨分裂表型。
- 细胞治疗终点为小鼠肿瘤控制和生存。患者细胞可重复性及临床结局仍是后续验证层级。
待核对问题与后续阅读
- 图3h的原图标签与正式勘误存在出入;事实及获取记录见coverage。该图本地完整保留,未选入网页;正文只引用作者对单营养素实验的定性报告,不据原标签计算营养素效果排序。
- Figure 4c和Methods的嘌呤霉素浓度单位不一致;本稿未把其中任何一个写成实验建议。
- JCB 2022《The low-density lipoprotein receptor–mTORC1 axis coordinates CD8⁺ T cell activation》(DOI 10.1083/jcb.202202011):核实书目与摘要,优先追读其胆固醇运输证据,尚未独立全文精读。
- 原始GEO/蛋白组未下载重算;统计按各图注描述,未自行改变检验口径。